
Publicaciones Científicas
Investigación y divulgación científica sobre especies marinas y conservación.
-

Composición de especies de tiburones y variabilidad de las capturas en la pesquería artesanal del Pacífico de Guatemala: una propuesta para la gestión espacial y temporal.
Contenido disponible en ScienceDirect Regional Studies in Marine Science página de la revista: www.elsevier.com/locate/rsma Composición de especies de tiburones y variabilidad de las capturas en la pesquería artesanal del Pacífico de Guatemala: un llamado a la gestión espacial y temporal Maria de Belén Chacón-Paz, Julio Sánchez-Jiménez, Elisa Areano, Juan Carlos Pérez-Jiménez a Fundación Mundo Azul, Km 21.5 carretera a Villa Canales, Ciudad de Guatemala, Guatemala b El Colegio de la Frontera Sur, Av. Rancho Polígono 2-A, Ciudad Industrial, CP. 24500, Lerma, Campeche, México *Autor de correspondencia: jcperez@ecosur.mx (J.C. Pérez-Jiménez). https://doi.org/10.1016/j.rsma.2026.105113 Recibido el 17 de diciembre de 2025; recibido en su forma revisada el 29 de mayo de 2026; aceptado el 1 de junio de 2026 Disponible en línea el 5 de junio de 2026 2352-4855/© 2026 Los autores. Publicado por Elsevier B.V. Este es un artículo de acceso abierto bajo licencia CC BY ( http://creativecommons.org/licenses/by/4.0 ). Resumen Las pesquerías artesanales de tiburón a lo largo de la costa Pacífica de Guatemala operan con una regulación mínima, lo que genera preocupación sobre la sostenibilidad de las capturas y la conservación de especies vulnerables. En apoyo al Plan de Acción Nacional para Tiburones, Rayas y Quimeras de Guatemala (PAN-Guatemala), este estudio tuvo como objetivos (1) actualizar el inventario de especies de tiburón desembarcadas en la pesca artesanal y (2) evaluar la variación estacional y anual en las tasas de captura, la estructura de tallas, la proporción de sexos y las etapas de madurez de las especies desembarcadas con mayor frecuencia. Entre 2017 y 2024, 2386 días de monitoreo permitieron recopilar datos de 9527 viajes de pesca en las principales comunidades. Se registró un total de 24,987 tiburones pertenecientes a 14 especies, de las cuales cinco — Sphyrna lewini , Rhizoprionodon longurio , Carcharhinus falciformis , Mustelus lunulatus y C. limbatus — representaron el 98.5% de los desembarques. Cabe destacar que el 78.5% de las especies registradas están clasificadas como amenazadas por la UICN, y que la captura estuvo fuertemente dominada por etapas tempranas de vida. Las tendencias estacionales de talla indicaron una presencia constante de estas etapas en aguas costeras (capturadas en operaciones de pesca realizadas dentro de los 30 km desde la costa), patrón que se mantuvo de manera consistente a lo largo de los años. El CPUE (captura por unidad de esfuerzo) y la estructura de tallas mostraron patrones de variación espacial y estacional, probablemente influenciados por diferencias en la selectividad de las artes de pesca, las características del hábitat y la naturaleza no estandarizada de las estimaciones de CPUE. Sin embargo, estos hallazgos resaltan el valor potencial de las estrategias de gestión espacial y temporal, así como la necesidad de continuar la investigación, el monitoreo comunitario y las iniciativas de comanejo para refinar, orientar y fortalecer su implementación en las pesquerías artesanales de las comunidades costeras estudiadas a lo largo de la costa Pacífica de Guatemala. 1. Introducción La Zona Económica Exclusiva (ZEE) de Guatemala abarca aproximadamente 110,944 km², incluyendo una plataforma continental de 14,009 km² y 254 km de línea costera. Estas áreas marinas y costeras sostienen poblaciones de importancia comercial de peces óseos, crustáceos y elasmobranquios. Aunque la pesca contribuye solo con el 0.2% al Producto Interno Bruto (PIB) nacional, sigue siendo una fuente vital de seguridad alimentaria y empleo para las comunidades costeras. Sin embargo, el estado de explotación de la mayoría de los recursos pesqueros del país sigue siendo poco comprendido debido a la falta de un programa permanente de monitoreo y evaluación pesquera (FAO, 2018). La Ley General de Pesca y Acuicultura de Guatemala define los procedimientos para obtener licencias y permisos de pesca; sin embargo, información crítica —como el número de pescadores activos, embarcaciones y esfuerzo pesquero total— permanece incompleta. Se estima que alrededor de 20,000 pescadores artesanales operan a nivel nacional, con aproximadamente el 70% con base en la costa del Pacífico, donde los volúmenes de captura son mayores (FAO, 2018). Las estimaciones de captura varían considerablemente: Lindop et al. (2015) reportaron desembarques anuales de entre 24,721 y 54,896 toneladas durante 2000–2010, mientras que la FAO (2018) reportó valores de entre 10,000 y 38,000 toneladas para el mismo período, lo que evidencia la incertidumbre en los registros oficiales. Las pesquerías artesanales de las costas Pacífica y Caribeña de Guatemala utilizan principalmente lanchas pequeñas (6–7 m) con motor fuera de borda. Los elasmobranquios, ya sea capturados de forma dirigida o como fauna de acompañamiento, se capturan principalmente con palangres y redes agalleras, que son las artes de pesca predominantes tanto en la costa Atlántica como en la Pacífica de Guatemala (Hacohen-Domené et al., 2020; Ávalos-Castillo y Santana-Morales, 2021). Sin embargo, la ausencia de programas sistemáticos de monitoreo de desembarques y de regulaciones específicas por especie para elasmobranquios ha resultado en una falta de datos confiables sobre las estimaciones de captura anual a nivel de especie. Las únicas cifras disponibles provienen de la FAO (2018), que reporta capturas nacionales de tiburón fluctuando entre 90.7 y 408 toneladas entre 2002 y 2015. A pesar de estos vacíos de información, estudios recientes han aportado información importante sobre la composición de capturas de elasmobranquios tanto en la pesca artesanal como en la de arrastre industrial en la costa del Pacífico. Ávalos-Castillo y Santana-Morales (2021) documentaron 21 especies de elasmobranquios desembarcadas por la flota artesanal entre 2017 y 2020, incluyendo diez especies de tiburón y once de raya. Las especies más frecuentemente reportadas fueron la raya látigo ( Hypanus longus , 47.88%), el tiburón martillo ( Sphyrna lewini , 33.26%) y el tiburón cazón bironche del Pacífico ( Rhizoprionodon longurio , 7.97%). Por su parte, Sánchez-Jiménez et al. (2023) reportaron la captura de 13 especies de elasmobranquios en la pesquería de arrastre camaronero entre 2017 y 2022, incluyendo 11 especies de raya y dos de tiburón. Las especies más comúnmente desembarcadas fueron la raya eléctrica vermiculada ( Narcine vermiculata , 32.03%), la raya redonda de cola espinosa ( Urotrygon aspidura , 29.85%), el guitarra hocico blanco ( Pseudobatos leucorhynchus , 13.68%) y la raya eléctrica gigante ( Narcine entemedor , 9.55%). Sin embargo, los análisis temporales de la composición y tasas de captura siguen siendo prácticamente inexistentes. El Plan de Acción Nacional para la Conservación y Manejo de Tiburones, Rayas y Quimeras (PAN-Guatemala) identifica la necesidad urgente de abordar importantes vacíos de información. Entre las prioridades clave se encuentra la recolección a largo plazo de datos sobre la composición de las capturas (p. ej., talla, sexo, madurez), el esfuerzo pesquero y las tasas de captura, con el fin de establecer indicadores de referencia para evaluar los impactos de la pesca y apoyar la toma de decisiones de manejo. En este contexto, el presente estudio tiene como objetivos: (1) actualizar el inventario de especies de tiburón registradas en los desembarques de la pesca artesanal a lo largo de la costa Pacífica de Guatemala, y (2) estimar la variabilidad estacional y anual en las tasas de captura, la estructura de tallas, la proporción de sexos y las etapas de madurez de las especies desembarcadas con mayor frecuencia. 2. Materiales y métodos 2.1. Declaración ética En este estudio no se realizaron experimentos con animales. Los ejemplares se registraron como parte de monitoreos dependientes de la pesca. Por lo tanto, todas las observaciones se realizaron sobre animales ya muertos, capturados durante operaciones de pesca comercial. 2.2. Área de estudio Los datos de desembarque de elasmobranquios se recolectaron en seis comunidades pesqueras artesanales a lo largo de la costa Pacífica de Guatemala: Champerico, El Dormido, Las Lisas, Buena Vista, San José y Sipacate (Fig. 1). Sin embargo, la mayoría de los registros provinieron de Las Lisas, Buena Vista y Sipacate. La plataforma continental del Pacífico guatemalteco es relativamente angosta, extendiéndose aproximadamente 50 km mar adentro, y abarca un área de 14,009 km². A lo largo de los 254 km de costa, alrededor de 45 comunidades se dedican a la pesca artesanal, donde los elasmobranquios se desembarcan comúnmente como fauna de acompañamiento (Ávalos-Castillo y Santana-Morales, 2021). Las Lisas se ubica dentro del humedal de Chiquimulilla, en el departamento de Santa Rosa. Sipacate, en el departamento de Escuintla, se encuentra dentro del Parque Nacional Sipacate-Naranjo, un área protegida costera de aproximadamente 20 km de largo y 1 km de ancho, que comprende manglares, lagunas y playas arenosas (CONAP, PNUD, 2017). A diferencia de los demás sitios, Buena Vista no se encuentra dentro de los límites de ningún humedal o área protegida formalmente reconocida. 2.3. Monitoreo dependiente de la pesca Las actividades de monitoreo se realizaron desde mayo de 2017 hasta febrero de 2020 por biólogos capacitados de la Fundación Mundo Azul. De marzo de 2020 a diciembre de 2024, el monitoreo fue continuado por un equipo combinado de biólogos y pescadores locales capacitados, como parte de un programa de Ciencia Ciudadana. Se completó un total de 2386 días de monitoreo, durante los cuales se registraron 9527 eventos de desembarque de embarcaciones de pesca artesanal. Estas embarcaciones son típicamente lanchas de fibra de vidrio de entre 7.5 y 9 m de eslora, equipadas con motor fuera de borda. Las pesquerías se dirigen principalmente a peces óseos y rayas utilizando redes agalleras de monofilamento (típicamente de ~600 m de longitud, con tamaños de malla de 4 a 6 cm), desplegadas en el fondo o en la columna media de agua. Además, se utilizaron palangres de fondo equipados con anzuelos tipo J o anzuelos circulares Eagle Claw, con líneas de entre aproximadamente 400 y 1100 anzuelos, de 3 a 6 cm de tamaño. Los viajes de pesca duraban típicamente entre 1 y 2 días, durante los cuales los pescadores realizaban entre uno y cinco calados. Estos valores representan rangos aproximados y pueden variar entre embarcaciones, tripulaciones y operaciones de pesca. Adicionalmente, debido al tipo de flota pesquera, no se registraron ubicaciones georreferenciadas precisas de la pesca; sin embargo, se documentó que las operaciones de pesca ocurren a lo largo de la zona costera, desde la línea de costa hasta una distancia máxima de 30 km mar adentro. La intensidad y frecuencia del monitoreo variaron a lo largo del período de estudio debido a cambios en el clima, el esfuerzo pesquero, la disponibilidad del recurso y la demanda de mercado. No fue posible estandarizar los datos de captura debido a la variabilidad en el tipo y cantidad de arte de pesca, así como en las especies objetivo. En muchos casos, los pescadores utilizaron una combinación de redes agalleras y palangres en el mismo viaje de pesca. Sin embargo, a partir de 2020, se registró de manera consistente el número de embarcaciones operando por día en Las Lisas, Buena Vista y Sipacate, lo que permitió calcular la Captura por Unidad de Esfuerzo (CPUE) como el número de tiburones desembarcados por embarcación. En este estudio, el CPUE se utiliza como un índice relativo de las tasas de captura derivado del monitoreo dependiente de la pesca, y no como una estimación estandarizada de abundancia. Debido a que el esfuerzo de monitoreo varió espacial y temporalmente entre comunidades y años, y que las características del arte de pesca (p. ej., número de anzuelos en los palangres, longitud de red y tiempo de remojo) no fueron estandarizadas entre embarcaciones, los valores de C
Ver PDF -

Combinando enfoques de monitoreo para revelar la diversidad de condrictios de profundidad en el Caribe de Guatemala.
Combinando enfoques de monitoreo para revelar la diversidad de condrictios de aguas profundas en las aguas caribeñas de Guatemala Ana Cristina Hernández-Solís1 · Julio Sánchez-Jiménez1 · Elisa M. Areano-Barillas1 · Juan Carlos Pérez-Jiménez1,2 Recibido: 26 de julio de 2025 / Revisado: 28 de enero de 2026 / Aceptado: 13 de abril de 2026 © Los Autores, bajo licencia exclusiva de Senckenberg Gesellschaft für Naturforschung 2026 Comunicado por F. A. Martínez Juan Carlos Pérez-Jiménez jcperez@ecosur.mx 1 Fundación Mundo Azul, Km 21.5 Carretera a Villa Canales, Guatemala, Guatemala 2 El Colegio de la Frontera Sur, Av. Rancho Polígono 2-A, Ciudad Industrial, 24500, Lerma, Campeche, México Resumen Entre 2015 y 2025, se registró un total de 124 individuos de condrictios de aguas profundas en El Quetzalito, Guatemala, mediante monitoreo dependiente de la pesquería (n=86) y muestreos independientes de la pesquería con palangre (n=38), representando siete especies de tiburones, una raya (skate) y una quimera. El tiburón carocho (Centrophorus granulosus) fue la especie más registrada en ambos tipos de muestreo, con presencia de hembras e individuos inmaduros entre las capturas. La captura por unidad de esfuerzo (CPUE) de C. granulosus mostró una tendencia decreciente en ambos enfoques de monitoreo, lo que subraya la importancia de continuar el monitoreo para comprender mejor estos patrones. Otras especies registradas incluyeron Hexanchus vitulus, Squalus cubensis, Neoharriotta carri, y varios taxones raros o de ocurrencia única. Los datos independientes de la pesquería revelaron especies no observadas en los desembarques comerciales recientes, como S. cubensis, lo que resalta el valor de los métodos de muestreo complementarios para detectar taxones subreportados en las pesquerías artesanales. El predominio de hembras maduras en los desembarques comerciales y de individuos inmaduros en los muestreos de investigación sugiere patrones espaciales o de comportamiento diferenciales que podrían influir en la capturabilidad. Este estudio proporciona una línea base para comprender la diversidad de elasmobranquios de aguas profundas en la región y resalta la importancia de combinar enfoques dependientes e independientes de la pesquería para generar datos sobre estas especies poco conocidas y vulnerables. Introducción Los ecosistemas de aguas profundas se encuentran entre los ambientes menos estudiados a nivel mundial (Ramírez-Llodra et al. 2010; Costello et al. 2017; Finucci et al. 2022, 2024). A pesar del incremento en la exploración de aguas profundas y la explotación de recursos en las últimas décadas, los muestreos científicos siguen siendo limitados, particularmente en regiones remotas, lo que resulta en un entendimiento incompleto de la biodiversidad de aguas profundas (Danovaro et al. 2014; Miller et al. 2018; Finucci et al. 2022). Las especies de aguas profundas representan el grupo más diverso, aunque menos estudiado, entre los condrictios (peces cartilaginosos, incluyendo tiburones, rayas y quimeras) (Finucci et al. 2022). Estas especies habitan principalmente profundidades mayores a 200 m durante todo su ciclo de vida (Kyne y Simpfendorfer 2007). Casi la mitad de todas las especies conocidas de condrictios se clasifican como especies de aguas profundas (Cotton y Grubbs 2015), y dado lo vasto de las regiones inexploradas del mar profundo, es probable que muchas más permanezcan sin descubrir (Finucci et al. 2022). Los condrictios de aguas profundas desempeñan roles ecológicos cruciales al conectar los ecosistemas pelágico, mesopelágico y bentónico mediante interacciones tróficas. Depredan sobre peces e invertebrados mesopelágicos, bentopelágicos y demersales, mientras que algunas especies también se alimentan de carroña de mamíferos marinos y descartes pesqueros, contribuyendo al ciclo de nutrientes en los ecosistemas de aguas profundas (Cotton y Grubbs 2015; Kyne y Simpfendorfer 2010; Pethybridge et al. 2012). Sin embargo, a pesar de su importante papel en el mantenimiento del equilibrio ecosistémico, los condrictios de aguas profundas pueden ser particularmente vulnerables a la sobrepesca debido a una combinación de rasgos biológicos y a la creciente presión pesquera en los hábitats de mar profundo (Kyne y Simpfendorfer 2010). Sus características de historia de vida, como el crecimiento lento, la madurez sexual tardía, la baja fecundidad, los periodos de gestación prolongados y la longevidad extendida, son adaptaciones evolutivas a las condiciones extremas del mar profundo, incluyendo bajas temperaturas, alta presión hidrostática, disponibilidad limitada de alimento y ausencia de luz solar, lo que restringe la producción primaria (Tyler et al. 2016; Finucci et al. 2022). Por ejemplo, especies como Centrophorus granulosus, Dalatias licha y Deania calceus presentan tasas intrínsecas de crecimiento poblacional muy bajas y actualmente están clasificadas entre Vulnerable y En Peligro Crítico en la Lista Roja de la UICN. Adicionalmente, experimentan una presión de depredación relativamente baja, siendo los tiburones de mayor tamaño sus principales depredadores naturales. Su estrategia reproductiva, que produce solo unas cuantas crías capaces de alcanzar la madurez, ha sido exitosa en ambientes estables y limitados por depredadores; sin embargo, esto las deja altamente susceptibles al declive poblacional bajo explotación humana (Cortés 2000; Rigby y Simpfendorfer 2015). Los condrictios de aguas profundas presentan una productividad incluso menor que sus parientes costeros y pelágicos, lo que hace que sus poblaciones sean menos resilientes a la presión pesquera y más propensas al agotamiento (García et al. 2008; Simpfendorfer y Kyne 2009). En las últimas décadas, la expansión de las pesquerías de aguas profundas ha incrementado significativamente la presión sobre los condrictios de aguas profundas, particularmente en regiones donde predominan la pesca de arrastre de fondo y el palangre de fondo (Baremore et al. 2021; Talwar et al. 2022). Muchos tiburones de aguas profundas son capturados como fauna de acompañamiento (bycatch) o son objeto de pesca dirigida por su carne, aceite de hígado y aletas; sin embargo, sus ciclos de vida lentos implican que incluso niveles bajos de pesca pueden ocasionar declives poblacionales severos. Dada su capacidad limitada de recuperación, la explotación continua sin un manejo efectivo podría llevar a muchos condrictios de aguas profundas hacia la extinción (García et al. 2008; Simpfendorfer y Kyne 2009). En la revisión de Finucci et al. (2024), se encontró que la mayoría de los condrictios de aguas profundas (87.7%) son capturados de forma incidental en pesquerías de arrastre, palangre y redes agalleras dirigidas a especies como granaderos y merluzas. Mientras tanto, el 11.6% de los condrictios de aguas profundas son objeto de pesca dirigida. Sin embargo, la pesca dirigida es una preocupación importante entre las especies amenazadas, afectando al 35% de las especies, particularmente aquellas de tres familias: tiburones peregrinos de profundidad (gulper sharks), galludos (dogfishes) y rayas de nariz dura (hardnose skates) (Finucci et al. 2024). La captura incidental en pesquerías de arrastre y palangre de aguas profundas sigue siendo un problema de conservación significativo, que frecuentemente conduce a declives poblacionales (Kyne y Simpfendorfer 2010). Adicionalmente, la degradación del hábitat y la huella creciente de las pesquerías industriales amenazan aún más a estas especies, resaltando la urgente necesidad de mejorar las estrategias de manejo y conservación. Aunque no existen datos publicados que describan una expansión directa de las pesquerías del Caribe guatemalteco hacia hábitats de mar profundo, estudios regionales indican que pesquerías similares en el Atlántico occidental se han desplazado cada vez más hacia aguas más profundas tras el declive de los recursos costeros (Baremore et al. 2021; Talwar et al. 2022). Con base en estos patrones documentados, podría ocurrir una expansión comparable en el Caribe guatemalteco, particularmente a lo largo de la fosa de Caimán. Sin embargo, el grado en que las pesquerías locales puedan transicionar hacia hábitats más profundos sigue siendo, en gran medida, desconocido. Los pescadores artesanales de El Quetzalito reportaron que las zonas de pesca más profundas producen mayores capturas de meros y ocasionalmente tiburones pelágicos, lo que hace estas áreas atractivas; no obstante, estas observaciones deben interpretarse como percepciones locales y no como evidencia de una expansión sistemática. Desde 2015, los esfuerzos liderados por Fundación Mundo Azul, en colaboración con pescadores artesanales, han permitido documentar al menos ocho especies de condrictios de aguas profundas en aguas guatemaltecas. Entre las más destacadas se encuentran Centrophorus granulosus (En Peligro) y Dalatias licha (Vulnerable), ambas especies de preocupación para la conservación debido a su limitado potencial reproductivo y su susceptibilidad a la sobreexplotación. Otras especies registradas incluyen Hexanchus griseus, Heptranchias perlo, Squalus cubensis, Scyliorhinus hesperius, Hexanchus vitulus, Cirrhigaleus asper, y la quimera Neoharriotta carri. Varias de estas representan hallazgos recientes y significativos para la fauna marina del país. Por ejemplo, los primeros registros nacionales de S. hesperius, H. perlo, N. carri y H. vitulus fueron reportados por Hacohen-Domené et al. (2016a, 2016b), Polanco-Vásquez et al. (2017), y Avalos-Castillo et al. (2020), respectivamente, mientras que D. licha y H. griseus fueron agregadas a la lista más recientemente por Sánchez-Jiménez et al. (2024a, 2024b). Aunque cada año el Ministerio de Agricultura, Ganadería y Alimentación (MAGA), a través de la Dirección de Normatividad de la Pesca y Acuicultura (DIPESCA), establece una veda de 4 meses para tiburones y rayas, el impacto actual de la pesca sobre los condrictios de aguas profundas en la región sigue siendo desconocido debido a la falta de monitoreo y reporte específico por especie. El objetivo principal de este trabajo es describir la diversidad y composición de captura de los condrictios de aguas profundas en muestreos tanto dependientes como independientes de la pesquería, realizados en el Caribe de Guatemala. Este estudio busca proporcionar información base esencial para orientar futuras estrategias de conservación y mejorar el manejo de estas especies vulnerables y poco estudiadas. Material y métodos Área de estudio El estudio se llevó a cabo en la comunidad costera de El Quetzalito (Fig. 1), ubicada en el municipio de Puerto Barrios, Izabal, Guatemala. Desde 2015, Fundación Mundo Azul ha realizado monitoreo de desembarques de condrictios en esta comunidad. Recientemente, en 2022, la organización inició muestreos científicos con palangre en las aguas profundas del mar territorial caribeño de Guatemala, dentro del área marina del Refugio de Vida Silvestre Punta de Manabique (RVSPM), colindante con El Quetzalito. Fig. 1 Área de estudio en el Caribe guatemalteco, mostrando la batimetría (m) y la ubicación de la comunidad costera de El Quetzalito. El mapa insertado (superior izquierda) indica la ubicación de Guatemala dentro de Centroamérica, mientras que el panel principal representa el mar Caribe, resaltando los rasgos geomorfológicos de aguas profundas de la fosa de Caimán. Muestreos de monitoreo dependiente de la pesquería Pescadores locales y jóvenes de El Quetzalito fueron capacitados para realizar el monitoreo de desembarques de condrictios capturados durante las faenas de pesca artesanal. Estos monitores formaron parte de un Programa de Ciencia Ciudadana. Los monitores registraron datos sobre composición de especies, número de ejemplares, longitud total (± 1 cm), arte de pesca utilizado y el número de embarcaciones que regresaban de la faena cada día. Se registró un total de 65 faenas de pesca artesanal entre febrero de 2015 y
Ver PDF -

Riqueza y abundancia de peces arrecifales en el Caribe de Guatemala utilizando Estaciones Remotas de Video Subacuático con Carnada
Riqueza y abundancia de peces arrecifales en el Caribe de Guatemala utilizando Estaciones Remotas de Video Subacuático con Carnada *Francisco Polanco-Vásquez 1, 2 , Alerick Pacay 2 , José R. Ortíz-Aldana 1 , Ana Hacohen-Domené2, Cristopher Avalos-Castillo 2 1 Instituto de Investigaciones Hidrobiológicas, Centro de Estudios del Mar y Acuicultura (Cema), Universidad de San Carlos de Guatemala (Usac); 2 Fundación Mundo Azul (FUNMZ), Guatemala *Autor al que se dirige la correspondencia: polancoenca@gmail.com Recibido: 15 de marzo 2017 / 1era. Revisión: 20 de marzo 2018 / 2da. Revisión: 31 de mayo 2018 / Aceptado: 24 de septiembre 2018 Resumen El mar Caribe de Guatemala forma parte del Sistema Arrecifal Mesoamericano (SAM), el cual alberga una alta diversidad de especies marinas. Dichas poblaciones son importantes para el bienestar de las comunidades humanas que habitan en la zona marino-costera de los países que conforman el SAM, y que dependen de manera directa o indirecta de estos recursos. El objetivo de este estudio fue determinar la riqueza y abundancia tanto de las especies de peces herbívoros presentes en el área, como de aquellas que son atraídas por carnada de sábalo y atún, utilizando la metodología de Estaciones Remotas de Video Subacuático con Carnada BRUVS en sitios con presencia de arrecifes. El muestreo se realizó en siete sitios ubicados fuera de la Bahía de Amatique, Izabal, en abril, junio y septiembre de 2016. Se grabaron 26.06 h, en 21 sets de BRUVS. Se contabilizaron 778 organismos, correspondientes a dos clases, 20 familias, 31 géneros y 59 especies. Las especies más abundantes en el estudio fueron Scarus spp. (19.67 %), Clepticus parrae (9.64 %), Aluterus scriptus (6.04 %), Scarus iserti (5.14 %) y Caranx ruber (5.01 %). Los sitios Quetzalito 1 y 2 presentaron una riqueza de especies significativamente mayor ( p < 0.006) al resto de sitios de muestreo. Quetzalito 1, 2 y King Fish presentaron una abundancia significativamente mayor ( p < .038) al resto de sitios. El dendrograma derivado de la abundancia por especie para los sitios de muestreo, mostró cinco agrupaciones (similaridad de Bray-Curtis del 43 %). Finalmente se observó una baja presencia de peces de importancia comercial en los siete puntos evaluados. Palabras claves Bahía de Amatique, Scaridae, Scarus , BRUVS. Introducción El Sistema Arrecifal Mesoamericano (SAM), es una estructura viviente que se extiende por más de 1,000 km a lo largo de la zona marino-costera de sus cuatro países miembros (México, Belice, Guatemala y Honduras). Esta región es considerada de alta importancia, tanto biológica como socioeconómica, ya que sostiene gran parte de la economía local de las comunidades costeras asentadas en el SAM (Kramer et al., 2015). El SAM es el segundo arrecife de coral más grande del mundo y presenta una gran variedad de ecosistemas costeros como manglares, praderas marinas, llanuras de fango y arrecifes coralinos (Adams et al., 2006; Mumby et al., 2004; Vásquez, Vega, Montero, & Sosa, 2011). Históricamente, las investigaciones científicas para comunidades ictiológicas, realizaban monitoreos invasivos y destructivos con el fin de reducir el error estadístico de muestreo (Ackerman & Bellwood, 2000). Posteriormente, este tipo de metodologías fueron re- emplazadas por buceos, donde los buzos registraban datos de abundancia y estimaban las tallas de peces dentro de los límites de transectos determinados. Sin embargo, se detectaron varias inconsistencias en cuanto a la abundancia y tamaño de los organismos debido a la variación de criterios de los investigadores (Harvey, Fletcher, Shortis, & Kendrick, 2004). Actualmente, no se cuenta con una metodología estandarizada no invasiva que permita evaluar la eficacia con relación a los objetivos de conservación y puedaser aplicada y replicada en el monitoreo continuo dentro de las áreas marinas protegidas(De Vos, Götz, Winker, & Attwood, 2014). En este sentido la metodóloga de Estaciones Remotas de Video Subacuático con Carnada (BRUVS, por sus siglas en inglés) es muy útil ya que es eficiente para el análisis de comunidad de peces, requiriendo menor esfuerzo de muestreo en comparación de otras metodologías y muestras más sensibilidad para mostrar diferencias estadísticas en las abundancias de las diferentes comunidades (Bernard & Gotz, 2012; Harvey et al., 2012). Además, utilizar esta metodología puede resultar en la reducción de tiempo en campo, número de personal capacitado y puede llegar a ser más eficiente que la utilización de buzos (Watson, Harvey, Anderson, & Kendrick, 2005). Los BRUVS constan de una estructura de PVC, la cual porta una videocámara subacuática y una red metálica de carnada colocada en el campo de visión de la cámara. Esta metodología es utilizada en hábitats marinos sensibles y de batimetría compleja. Asimismo, ésta se ha convertido en una técnica de muestreo de peces arrecifales no invasiva, principalmente donde el acceso a través de equipo autónomo de buceo es complicado y donde los muestreos podrían comprometer los objetivos de conservación del área o la confiabilidad de los datos (Cappo, Speare, & De´ath, 2004; De Vos et al., 2014). Esta metodología puede ser utilizada para la determinación de la riqueza de especies, con relación a la estructura del ensamble de la ictiofauna en hábitats coralinos (Cappo et al., 2004; Cappo, Stowar, Syms, Johansson, & Cooper, 2011; Meekan & Meeken, 2006). Algunos autores han utilizado esta metodología y sus variables sin carnada para la determinación de poblaciones, tanto de peces óseos, como de depredadores tope en el SAM (Andradi-Brown et al., 2016b; Bond et al., 2012). Esto ha permitido determinar la presencia-ausencia de estos organismos en los ecosistemas de arrecife, tomando en cuenta las tallas y abundancia de diferentes especies. El colapso de los arrecifes de coral en el Caribe ha sido atribuido en parte a la sobrepesca que ha ocurrido históricamente en la región (Newman, Paredes, Sala, & Jackson, 2006). En ese sentido, el presente estudio tiene como objetivo principal evaluar la abundancia y riqueza de las especies de peces arrecifales, tanto como peces herbívoros y de importancia comercial, en siete sitios coralinos en el mar Caribe de Guatemala utilizando la metodología BRUVS. Materiales y métodos Área de estudio y sitios de muestreo El estudio se llevó a cabo en siete sitios con presencia de arrecifes coralinos en el mar Caribe de Guatemala, ubicados a un rango de profundidad entre 5-11 m, fuera de la Bahía de Amatique: Quetzalito 1 (QUE1), Quetzalito 2 (QUE2), Motagüilla 1 (MOT1), Motagüilla 2 (MOT2), que son ecosistemas arrecifales formados por valles y crestas, y Cabo Tres Puntas1 (CTP1), Cabo Tres Puntas 2 (CTP2), y King Fish (KIN), que son parches arrecifales de menor tamaño. Los sitios muestreados tienen libre acceso a la pesca. Todos los sitios fueron seleccionados basándose en los ecosistemas de arrecifes coralinos presentes en el área (Figura 1). En total, se realizaron tres muestreos aplicando la metodología de BRUVS en los meses de abril, junio y septiembre de 2016. Todas las réplicas fueron realizadas por la mañana, cada sitio en el mismo horario y sin aleatorización de los mismos. Descripción de los BRUVS Se utilizaron cámaras portátiles GoPro Hero ® 3 y 4, las cuales fueron enganchadas a una tabla de madera sobrepuesta sobre una estructura triangular en forma de trípode, fabricada con tubos de Poli-Cloruro de Vinilo (PVC). Para evitar el movimiento de la estructura, se colocaron barras de acero, como lastre, en la parte inferior de la misma. La carnada utilizada durante el monitoreo fue sábalo y atún, la cual se colocó en la parte posterior de un tubo de 1.5 m de largo, en una bolsa fabricada de malla metálica de 2.5 cm de abertura. Los BRUVS tuvieron sujetado un lazo de 20 m de largo y una boya blanca y se sumergieron aproximadamente una hora cada uno (Figura 2). Finalmente, en cada sitio de muestreo se tomaron las coordenadas geográficas. El análisis fue realizado a través de la observación de los videos, con el programa Windows Media Player ©. Se inició el análisis del video a partir del minuto cinco (5:00 min), momento cuando la lancha había partido del sitio. Una vez cumplida la hora de filmación, se procedió a acercarse al sitio para recoger la estructura (Brooks, Sloman, Sims, & Danylchuk, 2011). Las especies observadas en los videos fueron identificadas hasta el menor taxón, mediante guías de identificación de la fauna arrecifal (Carpenter, 2002; Humann & DeLoach, 2014). Finalmente, se hizo un conteo de los especímenes de cada especie observada, con la finalidad de calcular la riqueza y abundancia de especies en cada punto de muestreo. Análisis estadístico Para cada sitio de muestreo, se identificó y contabilizó cada una de las especies que aparecían dentro del cuadro de video. Con esta información se realizó el análisis de varianza de Kruskal-Wallis (1952) para establecer si existían diferencias significativas de la abundancia y riqueza de las especies entre los sitios. Además, se utilizó la prueba de Friedman-Dunn (1937) para establecer que media fue mayor o menor. Para calcular la diversidad estimada se utilizaron los estimadores de diversidad no paramétricos de Chao 1 y el Abundance-based coverage estimator (ACE por sus siglas en inglés), de igual manera se realizó una curva de acumulación de especies mediante el programa EstimateS Versión 9.1.0 (Colwell, 2013). Para evaluar la heterogeneidad de las especies en los sitios de muestreo se analizaron los índices de diversidad (H’) de Shannon-Weaver y equidad de Pielou (J´) mediante el programa PAST (Statistical Version 1.93 para Windows XP). Así mismo se realizó una conversión del índice de Shannon-Weaver (H) a número efectivo de especies mediante la siguiente ecuación: 1 D = exp (H’) Se aplicó el análisis de conglomerados, utilizando el índice de Bray-Curtis para calcular y visualizar las similitudes entre los sitios, tomando en cuenta las abundancias de los organismos. El agrupamiento de los sitios de muestreo basado en la abundancia de peces se exploró mediante un análisis de escalamiento no métrico multidimensional (NMDS). Resultados Se grabaron 26.06 h en 21 sets de BRUVS, distribuidos en siete sitios de muestreo. Se contabilizaron 778 organismos correspondientes a dos clases, 20 familias, 31 géneros y 59 especies de peces (Tabla 1). Las especies más abundantes en el estudio fueron Scarus spp. (19.67 %), Clepticus parrae Bloch & Schneider, 1801 (9.64 %), Aluterus scriptus Osbeck, 1765 (6.04 %), Scarus iserti Bloch, 1789 (5.14 %) y Caranx ruber Bloch, 1793 (5.01 %). El resto de las especies presentó una abundancia porcentual individual menor al 5 %. La riqueza esperada de la curva de acumulación de especies muestra que con siete sitios de muestreo, la curva aún no alcanza la asíntota; por lo que se puede esperar un aumento con respecto al número de especies, si se aumentara la cantidad de sitios de muestreo. El estimador de diversidad no paramétrico ACE estimó 66 especies, mientras que Chao 1 estiró 63 especies (Figura 3). Se evidenciaron diferencias significativas en cuanto a la riqueza de especies (p = .006) y la abun dancia (p = .038) entre los sitios de muestreo, pero no se evidenció diferencias con respecto a las mismas variables entre los meses de muestreo (p = > .999). Los sitios con mayor riqueza fueron QUE1 y QUE 2 con 35 y 28 especies de peces respectivamente. Mientras que CTP1 y MOT1 fueron los sitios con menor número de especies (14). Con respecto a la abundancia, QUE1 y QUE2 fueron los sitios con mayor número de organismos con 259 y 119 peces respectivamente. Mientras que CTP2 (54 organismos) y MOT1 (44 organismos) presentaron la menor abundancia (Tabla 2). Tabla 1 Listado taxonómico y abundancia (No. de organismos/hora de grabación) de peces arrecifales en el Caribe de Guatemala Familia Especie QUE1 QUE2 CTP1 CTP2 MOT1 MOT2 KING Total Acanthuridae Acanthurus chirurgus 6 9 2 0 3 5 0 25 Acant
Ver PDF -

Primeros registros del tiburón toro dentado (Odontaspis ferox) frente a la costacontinental de Ecuador
Primeros registros del tiburón toro dentado, Odontaspis ferox (Elasmobranchii: Lamniformes: Odontaspididae), frente al Ecuador continental Colombo ESTUPIÑÁN-MONTAÑO 1 , Felipe GALVÁN-MAGAÑA 2 *, Ana HACOHEN-DOMENÉ 3 , and Jose F. ESTUPIÑÁN-ORTÍZ 1 1 Fundación Alium Pacific, Santiago de Cali, Colombia 2 Instituto Politécnico Nacional, Centro Interdisciplinario de Ciencias Marinas, La Paz, Baja California Sur, México 3 Fundación Mundo Azul, Guatemala, Guatemala Estupiñán-Montaño C., Galván-Magaña F., Hacohen-Domené A., Estupiñán-Ortíz J.F. 2016. First reports of smalltooth sand tiger sharks, Odontaspis ferox (Elasmobranchii: Lamniformes: Odontaspididae), off the continental Ecuador. Acta Ichthyol. Piscat. 46 (3): 251–253. * Correspondencia: Dr. Felipe Galván-Magaña, Av. Instituto Politécnico Nacional s/n. Colonia Playa Palo de Santa Rita, La Paz, Baja California Sur, C.P. 23096, México, correo electrónico: (FGM) galvan.felipe@gmail.com, (CEM) goliathcem@gmail.com, (AHD) anahacohen@gmail.com, (JFEO) felixes55@yahoo.es. Resumen Se presenta el primer registro de dos tiburones toro dentado, Odontaspis ferox (Risso, 1810), frente al Ecuador continental. Los especímenes fueron capturados por la flota pesquera ecuatoriana y desembarcados en Manta y en el cantón Puerto López, Ecuador. La hembra juvenil se registró en noviembre de 2008 y el macho adulto en julio de 2009. Ambos ejemplares registrados amplían el ámbito geográfico de distribución de O. ferox en el océano Pacífico oriental tropical. Palabras clave biodiversidad ecuatoriana, ámbito de distribución, nueva ocurrencia, Pacífico ecuatoriano Las pesquerías industrial y artesanal son actividades económicas importantes en Ecuador. La ciudad de Manta es el puerto pesquero donde se desembarcan los mayores volúmenes de tiburones (casi 40 000 tiburones cada año). Se capturan hasta 30 especies de tiburones frente a la costa del país. Las especies de la familia Alopiidae presentan los mayores volúmenes de captura, seguidas por Carcharhinidae, Sphyrnidae, Triakidae, Squatinidae y Lamnidae (Estupiñán-Montaño, observación personal). La familia Odontaspididae se distribuye en mares templados cálidos y tropicales, y sus miembros habitan generalmente cerca de la costa y en aguas profundas. Su amplia distribución geográfica abarca todos los océanos, aguas costeras y aguas superficiales y profundas (hasta los 1600 m). Esta familia incluye dos géneros: Carcharias y Odontaspis, y cuatro especies: el tiburón toro, Carcharias taurus Rafinesque, 1810; el tiburón toro de la India, Carcharias tricuspidatus Day, 1878; el tiburón toro dentado, Odontaspis ferox (Risso, 1810); y el tiburón toro ojigrande, Odontaspis noronhai (Maul, 1955). Todas las especies conocidas de esta familia son de gran tamaño (>360 cm de longitud total) (Compagno 1984). En el Pacífico centro-oriental solo se ha identificado una especie: Odontaspis ferox, que se distribuye desde el sur de California hasta el golfo de California (Compagno 1984, Fischer et al. 1995). El tiburón toro dentado, O. ferox, también ha sido reportado frente a la isla del Coco, Costa Rica; la isla Malpelo, Colombia (Robertson y Allen 2002); las islas Galápagos, Ecuador (Acuña-Marrero et al. 2013, Ritter y Compagno 2013); y la isla San Ambrosio, Chile (Long et al. 2014). Los hallazgos aquí descritos constituyen el primer registro de pesca de Odontaspis ferox frente al Ecuador continental. En consecuencia, los hallazgos reportados incrementan la biodiversidad de peces cartilaginosos frente al Ecuador continental y amplían el ámbito de distribución del tiburón toro dentado, O. ferox, en aguas ecuatorianas y en el océano Pacífico oriental tropical. El primer ejemplar fue reportado en el puerto de pesca artesanal de playa Tarqui, en Manta, Ecuador, en 2008, y el segundo individuo fue registrado en el puerto del cantón Puerto López, Ecuador, en 2009. Cada individuo fue medido al centímetro más cercano y sexado (Tabla 1). Se tomaron fotografías de los cuerpos para mostrar con mayor detalle las características morfológicas de los tiburones. La identificación de ambos ejemplares se apoyó en las siguientes publicaciones: Compagno (1984), Rubio (1988), Fischer et al. (1995), Chirichigno (1998), Robertson y Allen (2015) y Nelson (2006). Se registraron dos ejemplares de Odontaspis ferox. El primer individuo fue una hembra juvenil de 121 cm de longitud total (LT), registrada el 27 de noviembre de 2008 y desembarcada en el puerto de Manta, Ecuador (Fig. 1). Sin embargo, no se dispone de información sobre el área de captura ni el método de captura (Fig. 2, Tabla 1). El segundo ejemplar de O. ferox fue un macho adulto de 262 cm LT, capturado por pescadores el 23 de julio de 2009 (Fig. 3, Tabla 1). El ejemplar fue capturado a una profundidad de ~14.6 m, a ~1460 m, mediante el método de red de deriva con una luz de malla de 12.7 cm. La red se caló durante la noche y se recogió a la mañana siguiente. El tiempo total de pesca fue de aproximadamente 12 h. Ambos registros se realizaron en la provincia de Manabí, Ecuador. Fig. 1. Sitios de desembarque del tiburón toro dentado, Odontaspis ferox, en Ecuador Tabla 1 Características morfométricas de dos ejemplares del tiburón toro dentado, Odontaspis ferox, capturados frente a la costa de Ecuador (medidas en cm) Parámetro Espécimen 1 Espécimen 2 Sexo Hembra Macho Madurez Juvenil Adulto Longitud total 121 262 Longitud furcal 101.4 225 Longitud precaudal 87.4 192 Longitud interdorsal 20 44 Longitud del gonopterigio 19 El espécimen 1 fue capturado el 27 de noviembre de 2008 y el espécimen 2, el 23 de julio de 2009. Odontaspis ferox ha sido reportado frente a las costas de las islas Hawái, el sur de California y el golfo de California (Compagno 1984, Fischer et al. 1995) en América del Norte; la isla Malpelo, Colombia (Allen y Robertson 2015); las islas Galápagos, Ecuador (Acuña-Marrero et al. 2013, Ritter y Compagno 2013); y la isla San Ambrosio, Chile (Long et al. 2014) en América del Sur. Odontaspis ferox se caracteriza por su hocico alargado y bulboso y sus ojos grandes (Fischer et al. 1995). Su dentición incluye dos o tres pares de cúspides laterales, dos pares de dientes sinfisiarios y de tres a cuatro dientes intermedios (Compagno 1984, Fischer et al. 1995). Todas estas características se observaron en los ejemplares registrados en Manta y en el cantón Puerto López, Ecuador (Figs. 2 y 3). Ambos ejemplares presentaron dos dientes intermedios y cuatro dientes sinfisiarios, cada uno con dos pares de cúspides laterales (Fig. 3), y ambos tenían ojos grandes. También son características de Odontaspis ferox sus grandes aletas dorsales. La primera aleta dorsal es mayor que la segunda. El origen de la segunda aleta dorsal se ubica cerca del final de la base de las aletas pélvicas (Compagno 1984), con una muesca muy evidente en el pedúnculo caudal (Fischer et al. 1995). Fig. 2. Hembra juvenil del tiburón toro dentado, Odontaspis ferox, desembarcada en Manta, Ecuador; espécimen 1 Estas características distintivas fueron identificadas en los dos ejemplares desembarcados en Manta y en el cantón Puerto López (Fig. 3). La aleta dorsal se situaba detrás de las aletas pectorales y la segunda aleta dorsal era menor que la primera. El origen de la segunda aleta dorsal se encontraba por encima del extremo libre de las aletas pélvicas y cerca del final de sus bases (Fig. 3). La aleta anal era de menor tamaño que la segunda aleta dorsal (Fig. 3). Estas características confirman que los ejemplares registrados en Manta y en el cantón Puerto López corresponden a O. ferox, la especie descrita por Risso (1810). Odontaspis ferox ha sido reportado frente a las costas de islas oceánicas, típicamente volcánicas, lo que sugiere la preferencia de O. ferox por hábitats oceánicos, donde puede encontrarse a grandes profundidades y, en ocasiones, cerca de la superficie (Compagno 1984). El comportamiento superficial de O. ferox se ha observado ocasionalmente en la isla Malpelo durante buceos recreativos y científicos, en un rango de profundidad de 15–30 m (Estupiñán-Montaño, observación personal). Este comportamiento pudo haber dado lugar a la captura del ejemplar de mayor tamaño (262 cm LT, este estudio), capturado mediante una red de deriva a una profundidad de 10–15 m. La presencia de un ejemplar pequeño de O. ferox (121 cm LT, este estudio), junto con el avistamiento de dos juveniles de O. ferox (< 100 cm LT) en el puerto de Buenaventura (Colombia) (Estupiñán-Montaño, datos no publicados), sugiere que los individuos que residen en estas islas oceánicas (p. ej., las islas Malpelo y Galápagos) podrían utilizar estos sitios como áreas de crianza. Sin embargo, esta hipótesis aún no ha sido confirmada, ya que no se dispone de información que la respalde. Finalmente, la importancia de este estudio radica en que constituye el primer reporte de la especie O. ferox en la pesquería ecuatoriana y en las aguas continentales de Ecuador. El estudio amplía el ámbito de distribución de O. ferox en el océano Pacífico oriental tropical. Fig. 3. Macho adulto del tiburón toro dentado, Odontaspis ferox, capturado con red de deriva y desembarcado en el cantón Puerto López, Ecuador; espécimen 2 Agradecimientos Agradecemos a los pescadores de los puertos de Manta y del cantón Puerto López por brindar información importante sobre la captura de los ejemplares y por permitirnos fotografiarlos. Agradecemos también a Vicky Flelitas por su asistencia en el campo y a Anika Mora-Coral por la preparación de las fotografías. FGM agradece al Instituto Politécnico Nacional (IPN) las becas otorgadas a través del Estímulo al Desempeño de los Investigadores (EDI) y de la Comisión de Operación y Fomento de Actividades Académicas (COFAA). Referencias Acuña-Marrero D., Zimmerhackel J.S., Mayorga J., Hearn A. 2013. First record of three shark species, Odontaspis ferox, Mustelus albipinnis and Centrophorus squamosus, from the Galápagos Islands. Marine Biodiversity Records 6: e87. DOI: 10.1017/S1755267213000596 Chirichigno N.F. 1998. Clave para identificar los peces marinos del Perú. Instituto del Mar del Perú, Informe No. 44. 2nd edn. Volumen 3 de Publicacion Especial del Instituto del Mar del Peru, Callao, Peru. Compagno L.J.V. 1984. FAO species catalogue. Sharks of the world: An annotated and illustrated guide of shark species known to date. Hexanchiformes to Lamniformes. Pp. 214–222. FAO Fisheries Synopsis No. 125, Vol. 4, Part 1., FAO, Rome. Fischer W., Krupp F., Schneider W., Sommer C., Carpenter K.E., Niem V.H. 1995. Guía FAO para la identificación de especies para los fines de pesca. Pacífico Centro-Oriental. Vol. 2. Vertebrados, Parte 1. Pp. 647–743. FAO, Rome. Long D.J., Sala E., Ballesteros E., Caselle J.E., Friedlander A.M., Klapfer A., Blum S., Constable H.B. 2014. Summary of South American records of the smalltooth sand tiger shark Odontaspis ferox (Chondrichthyes: Odontaspididae), with the first record from Chilean waters. Marine Biodiversity Records 7: e67. DOI: 10.1017/S1755267214000700 Nelson J.S. 2006. Fishes of the world. 4th edn. John Wiley and Sons, New York, NY, USA. Risso A. 1810. Ichthyologie de Nice, ou histoire naturelle des poisons du Departement des Alpes Maritimes. F. Schoell Paris, France. Ritter E., Compagno L.J.V. 2013. First record of a smalltooth sandtiger shark, Odontaspis ferox, from the Galápagos Islands. Marine Biodiversity Records 6: e130. DOI: 10.1017/S1755267213001115 Robertson D.R., Allen G.R. 2015. Peces costeros del Pacífico Oriental Tropical: Un sistema de información. Instituto Smithsonian de Investigaciones Tropicales. Balboa, Panamá. [CD-ROM]. Rubio R.E. 1988. Peces de importancia comercial para el Pacífico Colombiano. Departamento de Biología. Universidad del Valle, Cali, Colombia. Recibido: 7 de junio de 2016 Aceptado: 19 de agosto de 2016 Publicado electrónicamente: 30 de septiembre de 2016
Ver PDF -

Áreas de crianza del tiburón martillo en peligro crítico en el Pacífico guatemalteco
Áreas de crianza de un tiburón martillo en peligro crítico en el Pacífico de Guatemala Julio Sánchez-Jiménez 1 | María de los Rosales-Melgar 1 | Elisa Areano 1 | Ana C. Hernández 1 | Omar Santana-Morales 1 | Juan C. Pérez-Jiménez 1,2 1 Fundación Mundo Azul, Guatemala, Guatemala 2 El Colegio de la Frontera Sur, Campeche, México Correspondencia: Juan C. Pérez-Jiménez, El Colegio de la Frontera Sur, CP. 24500, Lerma, Campeche, México. Correo electrónico: jcperez@ecosur.mx Información de financiamiento: Rufford Foundation; PADI Foundation; Waitt Foundation; Shark Conservation Fund; Luis von Ahn Foundation Resumen El tiburón martillo común (Sphyrna lewini) es el tiburón que se desembarca con mayor frecuencia en las pesquerías artesanales de Guatemala. Entre 2017 y 2023, el monitoreo dependiente de la pesquería registró 10 000 individuos en tres comunidades pesqueras. Los neonatos representaron la mayor proporción (n = 5860), seguidos por los jóvenes del año (YOY, por sus siglas en inglés; n = 3929) y, en cantidades significativamente menores, juveniles (n = 183) y adultos (n = 28). Se observaron patrones estacionales evidentes, con picos de neonatos (84 %) y de YOY (67.5 %) entre mayo y agosto. Los datos sugieren que los neonatos y los YOY son frecuentes, tanto estacional como anualmente, en las tres áreas costeras. Palabras clave pesquerías artesanales, manejo pesquero, Guatemala, neonato, hábitat de crianza, Sphyrna lewini, YOY El tiburón martillo común, Sphyrna lewini (Griffith y Smith 1834), fue reevaluado recientemente como En Peligro Crítico por la UICN (Rigby et al., 2019) e incluido en el Apéndice II de CITES (CITES, 2019). Esta especie es el tiburón capturado con mayor frecuencia en aguas del Pacífico guatemalteco, lo que genera una preocupación considerable, ya que históricamente se han capturado neonatos y juveniles tempranos en áreas costeras (Avalos-Castillo y Santana-Morales, 2021; Ruíz Alvarado y Mijangos López, 1999; Ixquiac Cabrera et al., 2009). Avalos-Castillo y Santana-Morales (2021) observaron la presencia persistente de estadios tempranos del ciclo de vida entre 2017 y 2020, lo que sugiere que estas regiones costeras podrían cumplir los criterios establecidos por Heupel et al. (2007) para identificar áreas de crianza de tiburones. Lamentablemente, estas áreas son también importantes zonas de pesca. Por ejemplo, las actividades de pesca artesanal en el Pacífico guatemalteco se realizan durante todo el año, sin restricciones ni vedas estacionales (Avalos-Castillo y Santana-Morales, 2021), lo que dificulta la conservación de los tiburones. Reconociendo esta problemática, el Plan de Acción Nacional para Tiburones, Rayas y Quimeras (PAN-Guatemala; MAGA, 2021) identificó la delimitación de las áreas de crianza de tiburones como un objetivo prioritario de investigación para promover su protección. Este estudio tuvo como objetivo analizar la ocurrencia temporal y espacial de neonatos y jóvenes del año (YOY) de tiburón martillo común a lo largo de la costa del Pacífico de Guatemala, utilizando datos dependientes de la pesquería, para identificar áreas que potencialmente funcionen como zonas de crianza. Los registros de desembarque de tiburón martillo común se recopilaron en tres comunidades pesqueras de la costa del Pacífico de Guatemala. Los muestreos de monitoreo se realizaron de mayo de 2017 a febrero de 2020 por biólogos capacitados de Fundación Mundo Azul (Blue World Foundation), aunque el monitoreo en Buena Vista comenzó en 2019. De marzo de 2020 a junio de 2023, la recolección de datos estuvo a cargo de biólogos y, principalmente, de un programa de Ciencia Ciudadana, con la participación de monitores comunitarios capacitados. En este estudio no se realizaron experimentos con animales. Los tiburones martillo se registraron como parte de muestreos dependientes de la pesquería, por lo que todos los exámenes se realizaron sobre animales muertos capturados durante operaciones de pesca comercial. A lo largo de 1476 días de monitoreo, se recopilaron datos dependientes de la pesquería a partir de los desembarques de 52 embarcaciones artesanales en las tres comunidades pesqueras. Estas embarcaciones, construidas en fibra de vidrio y de 7.5–9 m de eslora, estaban equipadas con motores fuera de borda. Las pesquerías se dirigían a peces teleósteos y rayas mediante redes agalleras de monofilamento de fondo y de media agua (luz de malla de 4–6 cm) o palangres de fondo con anzuelos tipo J o Eagle Claw de media circunferencia (de 3–6 cm). Los tiburones martillo se midieron al centímetro más cercano utilizando la longitud total (LT), definida como la distancia horizontal desde la punta del hocico hasta la punta de la aleta caudal en su posición natural (Compagno, 1984). El sexo se determinó macroscópicamente según la presencia o ausencia de gonopterigios en las aletas pélvicas. Los tiburones se clasificaron en cuatro estadios de vida: (1) neonatos (Ne), identificados por la presencia de una cicatriz umbilical no cicatrizada o en proceso de cicatrización (Castro, 1993); (2) jóvenes del año (YOY), caracterizados por una cicatriz umbilical cerrada y clasificados como individuos dentro de su primer año de vida con base en la curva de crecimiento de von Bertalanffy de Piercy et al. (2007); (3) juveniles (J), tiburones mayores de un año pero aún no sexualmente maduros; y (4) adultos (A), en los machos cuando los gonopterigios estaban completamente calcificados (Clark y Schmidt, 1965), y en las hembras consideradas maduras si estaban preñadas o, de no estarlo, si medían más de 245 cm de LT (Castro, 2011). FIGURA 1 Proporciones de los estadios tempranos del ciclo de vida del tiburón martillo común (Sphyrna lewini) registrados durante el programa de monitoreo de desembarques de 2017 a 2023 en las comunidades pesqueras de Buena Vista, Las Lisas y Sipacate, en la costa del Pacífico de Guatemala. (a) Distribución porcentual general de neonatos (Ne), jóvenes del año (YOY) y juveniles y adultos combinados (J-A) entre las comunidades pesqueras. (b) Distribución porcentual mensual de neonatos entre las comunidades pesqueras. (c) Distribución porcentual mensual de jóvenes del año (YOY) entre las comunidades pesqueras. El número total de ejemplares registrados se indica junto al nombre de cada comunidad. TABLA 1 Registros anuales de neonatos y jóvenes del año de tiburón martillo común (Sphyrna lewini) del programa de monitoreo de desembarques en las comunidades pesqueras de Buena Vista, Las Lisas y Sipacate, en la costa del Pacífico de Guatemala. 2017 2018 2019 2020 2021 2022 2023 Total Neonatos Buena Vista 93 13 94 347 292 839 Las Lisas 122 46 103 339 207 67 91 975 Sipacate 36 71 332 1887 449 659 612 4046 Total 158 117 528 2239 750 1073 995 5860 Jóvenes del año (YOY) Buena Vista 50 40 437 129 656 Las Lisas 22 18 7 82 52 69 22 272 Sipacate 44 43 159 1718 265 448 324 3001 Total 66 61 216 1800 357 954 475 3920 Se registró un total de 10 000 tiburones martillo común en las tres comunidades pesqueras. Los neonatos fueron el estadio de vida observado con mayor frecuencia (n = 5860), seguidos por los YOY (n = 3929), mientras que los juveniles (n = 183) y los adultos (n = 28) representaron una pequeña fracción del total. En conjunto, los neonatos y los YOY representaron más del 96 % de todos los registros en las comunidades (Figura 1a). El intervalo de tallas y la media en cm de LT (media ± desviación estándar) para cada estadio fueron los siguientes: los neonatos variaron de 33.0 a 54.4 (50.2 ± 2.8), los YOY de 54.1 a 87.0 (62.9 ± 7.9), los juveniles de 87.3 a 144.0 (94.6 ± 7.9) y los adultos de 179.0 a 284.0 (247.7 ± 27.5). Se registraron neonatos y YOY en todos los años en las tres comunidades pesqueras, excepto en 2017 y 2018 en Buena Vista, donde no hubo esfuerzo de monitoreo. La mayoría de los registros de neonatos y YOY se obtuvieron entre 2020 y 2023, con 5057 neonatos (86.3 %) y 3586 YOY (91.3 %) (Tabla 1). Este incremento significativo se atribuye a la intensificación del esfuerzo de monitoreo implementado a través del programa de Ciencia Ciudadana. El mayor porcentaje de registros mensuales de neonatos se observó entre mayo y agosto (Figura 1b), mientras que los registros de YOY alcanzaron su punto máximo entre junio y septiembre (Figura 1c). De abril a junio, los neonatos representaron el 84.1 % y los YOY el 67.5 % de sus registros anuales totales. Específicamente, durante este periodo los registros de neonatos representaron más del 77 % del total de registros de neonatos en las tres comunidades: Buena Vista (77.8 %), Las Lisas (81.4 %) y Sipacate (85.9 %). De manera similar, en el mismo periodo, los registros de YOY representaron más del 52 % del total de registros de YOY de cada comunidad: Buena Vista (59.9 %), Las Lisas (52.9 %) y Sipacate (70.5 %). De julio a septiembre, los registros de YOY se distribuyeron de la siguiente manera: 34.6 % en Buena Vista, 37.5 % en Las Lisas y 24.8 % en Sipacate. Los datos indican que los neonatos y los YOY están presentes de forma constante, tanto estacional como anualmente, en las tres áreas costeras, lo que coincide con los criterios establecidos por Heupel et al. (2007). El presente estudio utilizó datos dependientes de la pesquería recopilados mediante un programa de Ciencia Ciudadana para analizar los patrones temporales de los tiburones martillo común en estadios tempranos. Si bien Heupel et al. (2007) subrayaron la importancia de utilizar datos independientes de la pesquería para identificar eficazmente los hábitats de crianza, con frecuencia no se dispone de datos de ese tipo con suficiente cobertura temporal y espacial (Froeschke et al., 2010), particularmente en regiones como el Pacífico guatemalteco. Una de las ventajas de utilizar un programa de Ciencia Ciudadana es la amplia cobertura del esfuerzo pesquero, que permite analizar los registros de captura estacionales y anuales en varias comunidades pesqueras. Además, los hallazgos confirman que, como demostraron Oñate-González et al. (2017) y Cuevas-Gómez et al. (2020), el monitoreo dependiente de la pesquería puede aportar eficazmente datos para identificar áreas de crianza en regiones costeras donde los datos independientes de la pesquería son limitados o inexistentes. Los hallazgos indicaron una tendencia a registrar un mayor número de neonatos y YOY en Sipacate. Ubicada en la costa central de Guatemala, Sipacate se encuentra a aproximadamente 43 km de Buena Vista y a 97 km de Las Lisas. Si bien las características generales de las tres áreas costeras estudiadas son similares, con aguas someras y turbias y fondos de lodo y arena ligeramente irregulares (Brenes et al., 1993; Ixquiac Cabrera et al., 2009), Sipacate destaca por su hábitat somero más amplio. Las isóbatas de 20 y 50 m se encuentran más alejadas de la costa en Sipacate en comparación con Buena Vista y Las Lisas. Esta mayor amplitud de hábitat es significativa, ya que las áreas de crianza suelen presentarse a profundidades de 10–50 m, con preferencia por los 20 m (Ixquiac Cabrera et al., 2009). Adicionalmente, el área costera entre Buena Vista y Las Lisas es más angosta y presenta un cañón profundo que desciende a más de 500 m. Guatemala publicó el Plan de Acción Nacional para Tiburones, Rayas y Quimeras (PAN-Guatemala) en 2008, actualizado recientemente en 2021 (MAGA, 2021). Entre sus temas prioritarios de investigación, el PAN destaca la identificación de áreas de crianza como un paso crítico para implementar medidas de protección efectivas. Definir estas áreas es esencial, particularmente para respaldar el establecimiento de zonas de recuperación pesquera (ZRP), como en la región costera de Las Lisas (Mojica et al., 2021). Este estudio subraya la necesidad de que cada comunidad establezca su propia ZRP para proteger los estadios tempranos del tiburón martillo común. Proteger estas áreas de crianza es crucial, ya que Elizondo-Sancho et al. (2022) demostraron un flujo génico limitado entre las áreas de crianza de Guatemala
Ver PDF -

Captura incidental de elasmobranquios en la pesquería de arrastre de camarón a lo largo de la Costa Pacífica de Guatemala
Captura incidental de elasmobranquios en la pesquería de arrastre de camarón en la costa del Pacífico de Guatemala Julio Sánchez (autor de contacto) 1 | Omar Santana Morales 1,2 | Rebeca Zertuche 2 | Elisa Areano 1 Correo electrónico del autor de contacto: jfsanchez89@gmail.com 1 Fundación Mundo Azul, Boulevard Rafael Landívar 10-05 Paseo Cayalá zona 16, Edificio D1, Oficina 202, 01016 Ciudad de Guatemala, Guatemala 2 Ecología Cielo, Mar y Tierra A.C., Avenida del Puerto 2270, Colonia Hidalgo, 22880 Ensenada, Baja California, México Resumen Se examinó la composición específica de la captura incidental en la pesquería de arrastre de camarón, en la costa del Pacífico de Guatemala. En total, se registraron 15 especies de elasmobranquios, incluidas 13 especies de rayas y 2 especies de tiburones. De estos taxones, 1 especie está enlistada como en riesgo crítico, 4 especies como casi amenazadas, 7 como vulnerables y 1 como de menor preocupación por la Unión Internacional para la Conservación de la Naturaleza. Actualmente, no existe un sistema oficial de monitoreo de la pesca de arrastre de camarón en Guatemala, por lo que se desconoce la abundancia y las características biológicas de las especies de elasmobranquios capturadas incidentalmente. Se carece de esta información debido a que sólo el 5.5% de la captura incidental de elasmobranquios registrada se desembarcó y comercializó por su valor económico. Manuscrito recibido el 15 de diciembre de 2022. Manuscrito aceptado el 25 de abril de 2023. Fish. Bull. 121:78–83 (2023). Fecha de publicación en línea: 25 de mayo de 2023. doi: 10.7755/FB.121.3.2 Las opiniones expresadas o implícitas en este artículo son las del autor (o autores) y no reflejan necesariamente la posición del National Marine Fisheries Service, NOAA. A nivel mundial, la pesca de arrastre de camarón presenta la tasa de descarte más alta de todas las pesquerías (27 % en 2005) (Kelleher, 2005). Aunque reducir la captura incidental es importante tanto desde el punto de vista económico como del manejo, en los países en desarrollo esta captura tiene valor económico y contribuye a la seguridad alimentaria de muchas comunidades costeras (Gillett, 2010; Barreto et al., 2022). No obstante, en muchos países de América Latina las pesquerías de arrastre de camarón están actualmente prohibidas por ser insostenibles (TNC 1 ). En Guatemala, especies de peces cartilaginosos y óseos son capturadas incidentalmente en la pesquería de arrastre de camarón, que sigue estando permitida. Las especies con valor comercial se retienen y las demás se descartan en el mar. La pesca de arrastre dirigida a 5 especies de camarón y 1 especie de langostino se realiza tanto en la costa del Pacífico como en la del Caribe de Guatemala (TNC 1 ). En la década de 1980 y hasta mediados de la de 1990, 60 embarcaciones grandes y alrededor de 1500 embarcaciones artesanales participaron en esta pesquería. Entre 1995 y 2000 ocurrió una reducción notable de la captura, que ha continuado hasta la actualidad. De 2010 a 2013 se desembarcaron entre 750 y 1500 toneladas métricas (t) de camarón (más 250 t de especies de captura incidental), pero de 2014 a 2016 solo se desembarcaron 150 t de camarón. En 2016, la captura incidental (100 t) superó la captura de camarón (50 t) (FAO, 2018). Ixquiac Cabrera (1998) identificó 148 especies de peces óseos y 11 especies de elasmobranquios en la captura incidental del camarón en la costa del Pacífico de Guatemala, aunque el estudio no incluyó un ciclo anual completo de pesca ni información sobre las características biológicas de los elasmobranquios capturados incidentalmente. Utilizando datos de las pesquerías artesanal y de arrastre que operan en la plataforma continental, Ixquiac Cabrera et al. 2 elaboraron un catálogo de las especies de batoideos presentes en el océano Pacífico de Guatemala y reportaron 15 especies de las familias Dasyatidae, Myliobatidae, Urotrygonidae, Rajidae, Rhinobatidae y Narcinidae. No obstante, existe un vacío de información considerable respecto a la captura incidental de la pesquería de arrastre de camarón. Con el fin de llenar ese vacío, desarrollamos un método para evaluar la captura incidental de distintos barcos camaroneros. Algunas embarcaciones proporcionaron de manera sistemática y voluntaria muestras de su captura incidental en cada viaje de pesca, de modo que pudiera caracterizarse su composición. A través de los resultados de este estudio, presentamos aquí una descripción actual de la pesquería de arrastre de camarón en Guatemala y caracterizamos la composición específica y las características biológicas de los elasmobranquios capturados incidentalmente. Estos datos contribuirán al manejo de estas especies. Materiales y métodos Área de estudio La pesca de arrastre de fondo se realiza a lo largo de la costa del Pacífico de Guatemala dentro de la zona económica exclusiva (83 000 km²), entre las isóbatas de 5 y 50 m (<30 km de la costa) (TNC 1 ). Los meses de temperatura baja van de enero a marzo (28.6–29.1 °C) y los de temperatura alta de abril a diciembre (29.2–30.2 °C) (Ponce Hernández, 2015). Por lo tanto, la temperatura superficial del mar en esta región es bastante estable a lo largo del año. La Dirección de Normatividad de la Pesca y Acuicultura (DIPESCA) de Guatemala realiza inspecciones oficiales en los sitios de desembarque industrial de Puerto San José y Buena Vista. Sin embargo, muchos barcos de arrastre y embarcaciones pequeñas utilizan estratégicamente la zona alternativa de desembarque artesanal de Las Lisas, ubicada a unos 150 km de los sitios de desembarque industrial y que cuenta con su propio mercado de pescado. Durante la época lluviosa (mayo–octubre), cuando las capturas son altas, los pescadores reciben los mejores precios en Las Lisas. Monitoreo de los desembarques Los tripulantes de las embarcaciones incluidas en este estudio recolectaron y conservaron voluntariamente una parte de los organismos que normalmente se descartan en el mar en cada viaje de pesca. Posteriormente recolectamos esos organismos y los utilizamos para obtener datos biológicos. Se documentaron los desembarques de 69 viajes de pesca distintos y 8 embarcaciones de arrastre distintas en Las Lisas de 2017 a 2022, y se muestrearon y fotografiaron porciones de los elasmobranquios retenidos de las capturas. Se registraron la longitud total (en tiburones se utilizó la extensión natural de la aleta caudal), el ancho de disco, el largo de disco y la longitud del gonopterigio (en machos), al 0.5 cm más cercano. La madurez de los machos se verificó mediante la calcificación de los gonopterigios. De manera oportunista se registraron los huevos o embriones que emergían de la cloaca en las hembras. Adicionalmente, las tripulaciones de los barcos de arrastre reunieron los elasmobranquios que iban a ser descartados y recolectaron una muestra (5–7 kg) por viaje. Cada ejemplar descartado fue fotografiado, medido e identificado siguiendo a Compagno (2001), Ebert y Fowler (2015) y Ebert et al. (2021). Para todas las especies resumimos las principales características morfológicas, la proporción de sexos y la talla de primera madurez obtenidas de la literatura (Villavicencio Garyzar, 2000; Anislado-Tolentino y Robinson-Mendoza, 2001; López et al. 3 ; Payán et al., 2011; Torres-Huerta 4 ; Castellanos Betancourt et al., 2013; Pincay-Espinoza y Romero-Calcedo, 2014; Torres Palacios, 2015; Vélez Tacuri, 2015; Carrera-Fernández et al., 2019; Ronquillo Moreira, 2019; Jiménez García, 2020), junto con el estado de conservación según la Lista Roja de Especies Amenazadas de la Unión Internacional para la Conservación de la Naturaleza (UICN) (IUCN, 2022). Finalmente, se elaboraron histogramas de frecuencia de tallas para las especies de las que se obtuvieron datos de más de 30 individuos. Resultados y discusión Actividad pesquera En la costa del Pacífico de Guatemala se capturan cinco especies de camarón: el camarón siete barbas (Xiphopenaeus kroyeri), el camarón cristal (Penaeus brevirostris), el camarón café (P. californiensis), el camarón blanco (P. vannamei) y el camarón azul (P. stylirostris), además de una especie de langostino, la langostilla pelágica (Pleuroncodes planipes) (TNC 1 ). También se capturan, desembarcan y comercializan especies de peces óseos, como el lenguado (Citharichthys gilberti), el pargo mancha (Lutjanus guttatus) y la sierra del Pacífico (Scomberomorus sierra) (Jolon-Morales et al. 5 ), y especies de tiburones, como el tiburón martillo común (Sphyrna lewini) (FUNMZ 6 ). De 2017 a 2022 operaron en la región 16 barcos camaroneros activos, con un promedio de 5 tripulantes, una eslora promedio de 18.66 m (13.00–22.87 m), un peso neto registrado promedio de 22.37 t [4–87 t] y un peso bruto registrado promedio de 70.49 t (14–170 t) (Morales 7 ). No existen vedas que regulen la pesca comercial de camarón; como resultado, la pesca de arrastre se realiza todo el año, aunque los barcos camaroneros son más activos durante la época lluviosa (FUNCAGUA 8 ). La flota de arrastre camaronero requiere permisos de 30 días otorgados por DIPESCA. Normalmente, las embarcaciones de arrastre trabajan de 12 a 15 días seguidos y realizan de 4 a 5 lances por día (3–4 h de operación en total por día). Observamos que los barcos de arrastre, con la intención de reducir los costos de combustible, realizaban desembarques parciales en Las Lisas con la ayuda de embarcaciones más pequeñas de la comunidad pesquera, en lugar de regresar a los muelles oficiales de Puerto San José y Buena Vista. Se dispone de un número limitado de personal capacitado de DIPESCA para realizar inspecciones y recolectar datos de los desembarques comerciales de camarón con el fin de controlar las actividades pesqueras en la costa del Pacífico de Guatemala; por lo tanto, los datos son limitados y poco confiables. La alta rotación de personal dentro de DIPESCA también ha dado lugar a capturas no reportadas o reportadas de manera irregular, y a datos poco confiables. Actualmente ningún programa de monitoreo registra los organismos adicionales capturados como fauna incidental en las actividades de arrastre camaronero. La información sobre la captura incidental en Guatemala es escasa, aunque se sabe que, además de elasmobranquios, con las artes de pesca de arrastre camaronero se capturan tortugas y mamíferos marinos. Desembarques En total, 43 viajes (62.3 % de los viajes) se realizaron durante la época lluviosa y 26 viajes (37.7 %) durante la época seca. Se registraron 1330 elasmobranquios pertenecientes a 5 órdenes, 12 familias y 15 especies. De estas 15 especies, 1 está enlistada como en peligro crítico, 4 como casi amenazadas, 7 como vulnerables y 1 como de preocupación menor en la Lista Roja de la UICN (Tabla 1) (IUCN, 2022). En conjunto, 73 individuos de elasmobranquios (5.5 % del total de elasmobranquios registrados) se consideraron de valor comercial y fueron vendidos. La captura incidental estuvo compuesta principalmente por 3 especies de rayas: la raya látigo (Hypanus longus), la raya gavilán dorada (Rhinoptera steindachneri) y la raya águila del Pacífico (Aetobatus laticeps), y 2 especies de tiburones: el tiburón martillo común y el tiburón toro (Carcharhinus leucas). Las aletas de los tiburones grandes (>1 m de longitud total) se secaron y comercializaron. Diez especies de elasmobranquios fueron descartadas (número de muestras [n]=1257, 94.5 % del total de individuos registrados; Tabla 1). De estas 10 especies, la raya eléctrica vermiculada (Narcine vermiculata) (n=426) fue la más abundante, seguida por la raya redonda panámica (Urotrygon aspidura) (n=397), el pez guitarra trompa blanca (Pseudobatos leucorhynchus) (n=182), la raya eléctrica gigante (N. entemedor) (n=127), la raya redonda chilena (U. chilensis) (n=72) y la raya látigo (n=38). Las demás especies estuvieron representadas por menos de 30 individuos (Tabla 1). Tabla 1. Número de muestras (n), proporción de machos (M) a hembras (H), intervalo d
Ver PDF -

Primer registro del tiburón de seis branquias de hocico romo (Bonnaterre, 1788) en el mar Caribe guatemalteco
Primer registro del tiburón de seis branquias de hocico romo Hexanchus griseus (Bonnaterre, 1788) en el mar Caribe de Guatemala Julio Sánchez-Jiménez 1 , Omar Santana-Morales 1 , Josué Ayala-Donado 1 , María de los Rosales-Melgar 1 , Elisa M. Areano-Barillas 1 , Mónica González-Jaramillo 2 y Juan Carlos Pérez-Jiménez 1,3 Autor de correspondencia: Juan Carlos Pérez-Jiménez (jcperez@ecosur.mx) Resumen El Caribe de Guatemala cuenta con un área de pesca de aguas profundas cercana a la costa, en torno a la fosa de Caimán. Este estudio reporta el primer registro del tiburón de seis branquias de hocico romo (Hexanchus griseus) en esta área de pesca. Se realizaron muestreos independientes de la pesquería con palangre a ~430-465 m de profundidad, a ~11 km al noreste de la aldea pesquera de El Quetzalito, en 2022 y 2023. Durante estos muestreos se capturaron dos tiburones de seis branquias de hocico romo. Ambos ejemplares fueron hembras, con longitudes totales de 300 y 310 cm, y con características morfológicas consistentes con esta especie. Estos son los primeros registros confirmados del tiburón de seis branquias de hocico romo en el mar Caribe occidental. La expansión de las pesquerías costeras hacia aguas más profundas representa una amenaza emergente para los condrictios de mar profundo de la región. Por lo tanto, se requiere un monitoreo pesquero periódico para estimar su vulnerabilidad a la presión pesquera. Palabras clave Hexanchus griseus; tiburón de seis branquias; biodiversidad de Hexanchidae; aguas profundas; fosa de Caimán; conservación en Guatemala El tiburón de seis branquias de hocico romo Hexanchus griseus (Bonaterre, 1788) es una especie de gran tamaño (al menos 482 cm de longitud total, LT) con una distribución discontinua a nivel mundial, que habita plataformas continentales e insulares desde la superficie hasta al menos 2500 m de profundidad, en aguas templadas y tropicales de los océanos Pacífico, Atlántico e Índico (Compagno 1984, Ebert et al. 2021). Castro (2011) reportó que existen diferencias ecológicas y de historia de vida entre las formas del Atlántico y del Pacífico, explicadas actualmente por Vella y Vella (2017) como resultado de la estructura poblacional. Además de las subdivisiones poblacionales entre los océanos Pacífico y Atlántico, existen subdivisiones dentro de los océanos e incluso a una escala menor dentro del mar Mediterráneo (Vella y Vella 2017), lo que resalta la necesidad de un conocimiento adecuado de su distribución a una escala más fina. A pesar de haber sido registrada en el mar Caribe suroccidental, en Colombia (Mejía-Falla y Navia 2019) y Venezuela (Ehemann et al. 2019, Tavares 2019), su presencia aún no estaba confirmada en el Caribe occidental. El tiburón de seis branquias de hocico romo fue evaluado globalmente en 2019 como Casi Amenazado (NT) en la Lista Roja de Especies Amenazadas de la UICN, ya que se estima que ha sufrido una reducción poblacional del 20-29 % en las últimas tres generaciones (160 años) (Finucci et al. 2020). Aunque la especie se captura incidentalmente con poca frecuencia en las pesquerías de aguas profundas a lo largo de su ámbito de distribución, existe un alto traslape entre su distribución y una presión pesquera intensiva, y hay una falta de manejo específico para la especie en todo su ámbito (Finucci et al. 2020). Esta situación resalta la necesidad de contar con información sobre su distribución a una escala más fina para evaluar los posibles impactos pesqueros u otras amenazas sobre sus poblaciones. Dos tiburones de seis branquias del orden Hexanchiformes, familia Hexanchidae, fueron capturados mediante muestreos independientes de la pesquería utilizando una embarcación de pesca artesanal (7.62 m de eslora con motor fuera de borda) de El Quetzalito, Guatemala, en septiembre de 2022 y abril de 2023. El muestreo se realizó al amparo del permiso Bno.1048, emitido por el Consejo Nacional de Áreas Protegidas (CONAP), como parte de un proyecto para generar una línea base de las pesquerías de elasmobranquios de aguas profundas. Los tiburones fueron capturados a ~430-465 m de profundidad con un palangre de diez anzuelos circulares N°18, cebados con sábalo Megalops atlanticus Valenciennes, 1847 y jurel negro Caranx lugubris Poey, 1860, y una barra de luz química cerca del anzuelo cebado para aumentar la atracción de los tiburones, en un área de pesca llamada El Hoyo (15°51’6.60”N, 88°14’33.78”O). El área se ubica a ~11 km al noreste de la aldea pesquera de El Quetzalito, en el margen de la fosa de Caimán. Los ejemplares fueron liberados después de determinar su sexo, y la longitud total se midió con una cinta métrica. Ambos tiburones fueron identificados siguiendo a Compagno (1984) y Ebert et al. (2021). El primer tiburón de seis branquias de hocico romo, una hembra de 310 cm de LT (Fig. 1), fue capturado y liberado el 12 de septiembre de 2022, y el segundo, una hembra de 300 cm de LT, fue capturado y liberado el 21 de abril de 2023. Se presume que ambas hembras eran inmaduras, ya que la talla de madurez es >400 cm de LT (Castro 2011, Ebert et al. 2021). Figura 1. Tiburón de seis branquias de hocico romo (Hexanchus griseus), hembra de 310 cm de LT capturada y liberada el 12 de septiembre de 2022 en el área de pesca de El Hoyo, Caribe de Guatemala. El círculo punteado resalta los seis pares de hendiduras branquiales. La observación visual de los ejemplares reveló características diagnósticas clave consistentes con los tiburones hexánquidos. Los individuos presentaron seis pares de hendiduras branquiales, una boca grande, una aleta dorsal sin espina situada detrás de las aletas pélvicas, un lóbulo inferior corto de la aleta caudal y una aleta anal. Más específicamente, ambos tiburones presentaron características clave del tiburón de seis branquias de hocico romo, incluyendo un cuerpo grande y robusto, cabeza ancha, ojos pequeños y una coloración gris o parda a negruzca en la zona dorsal. Otro tiburón de seis branquias presente en el área de estudio es el tiburón de seis branquias ojigrande del Atlántico, Hexanchus vitulus (Springer y Waller 1969), que se distingue del tiburón de hocico romo por su cuerpo esbelto y de tamaño mediano (talla máxima de 178 cm de LT), una boca ampliamente aguda y ojos relativamente grandes (Ebert et al. 2021). Aunque Finucci et al. (2020) y Ebert et al. (2021) incluyen otros países centroamericanos (Honduras, Nicaragua, Costa Rica y Panamá) en el mapa de distribución de la especie, su presencia en estos países aún no ha sido confirmada. Además, en la literatura solo se encuentran algunos registros confirmados del tiburón de seis branquias de hocico romo en el Atlántico occidental. Bigelow y Schroeder (1948) lo reportaron en la costa norte de Cuba y establecieron que era raro hacia el norte; por ejemplo, solo existía un registro de un ejemplar de Carolina del Norte, EUA. Bigelow y Schroeder (1948) también establecieron que no había evidencia de su presencia en ningún punto del golfo de México ni de la región del Caribe. Posteriormente, Gilhen y Coad (1991) reportaron su presencia en Nueva Escocia, Canadá, y Carey y Clark (1995) en Bermudas. Castro (2011) confirmó que el primer registro en el Atlántico noroccidental fue un ejemplar (310 cm de LT) capturado en Carolina del Norte (en 1886) y que existía otro registro (396 cm de LT) del delta del río Misisipi, norte del golfo de México (en 1963); se han reportado ejemplares adicionales de Cabo Hatteras, Nueva Inglaterra, Texas, Florida (Castro 2011), Maryland, Luisiana, Alabama, Nueva Jersey y Bahamas (Tabla 1). Tabla 1. Registros del tiburón de seis branquias de hocico romo (Hexanchus griseus) depositados en colecciones ictiológicas del Atlántico occidental. Colección ictiológica Número de catálogo País Sitio de colecta Profundidad (m) Año USNM 37790 EUA Carolina del Norte 1886 ANSP Fish 102597 Cuba La Habana 1934 USNM 111180 EUA Maryland 1942 USNM 112600 Bahamas Bimini 274 1948 UF Fish 102424 EUA Luisiana 0 1962 USNM 188048 EUA Luisiana 357-366 1962 UF Fish 101285 EUA Florida 180 1966 TCWC 3923.01 EUA Texas 1984 UF Fish 179524 EUA Carolina del Sur 1987 UF Fish 178570 Bahamas Isla Ábaco 152 1988 UF Fish 178571 Bahamas Isla Ábaco 152 1988 CMN 1990-0032.1 Canadá Nueva Escocia 1989 UF Fish 48458 EUA Alabama 0 1990 UF Fish 83993 EUA Alabama 0 1990 UF Fish 171140 EUA Nueva Jersey 2007 MCZ 36217 Cuba La Habana Sin datos MCZ 40424 Bahamas Bimini 304 Sin datos MCZ 35630 Cuba La Habana Sin datos NCSM 28450 EUA Sin datos En el mar Caribe, como se mencionó anteriormente, la especie ha sido reportada en Colombia (Mejía-Falla y Navia 2019) y Venezuela (Ehemann et al. 2019, Tavares 2019). El tiburón de seis branquias de hocico romo ha sido registrado en el Atlántico suroccidental (Coscarella et al. 1997, Sabadin et al. 2020, Santander-Neto et al. 2023), particularmente en el noreste de Brasil, donde Santander-Neto et al. (2023) reportan 23 ejemplares (principalmente hembras inmaduras de 180-300 cm de LT) capturados por pesquerías comerciales. Así, antes del presente estudio, los reportes de Cuba, Colombia y Venezuela eran los únicos registros verificados para el mar Caribe. Otras dos especies de la familia Hexanchidae han sido documentadas recientemente por primera vez en las pesquerías de pequeña escala en la misma área de pesca donde se capturaron los tiburones de seis branquias de hocico romo. Hacohen-Domené et al. (2017) documentaron dos hembras (28 y 37 cm de LT) de tiburón de siete branquias de hocico agudo, Heptranchias perlo, capturadas en 2016. Avalos-Castillo et al. (2020) reportaron 10 tiburones de seis branquias ojigrandes del Atlántico, H. vitulus (61-165 cm de LT), capturados entre 2015 y 2019. En el mar Caribe, el tiburón de siete branquias de hocico agudo y el tiburón de seis branquias ojigrande del Atlántico también han sido registrados en Colombia (Mejía-Falla y Navia 2019), Jamaica (McLaughlin y Morrissey 2004) y Venezuela (Ehemann et al. 2019, Tavares 2019) y, adicionalmente, el tiburón de seis branquias ojigrande del Atlántico en Bahamas (Springer y Waller 1969) y Belice (Daly-Engel et al. 2019). Mejía-Falla y Navia (2019) reportaron el tiburón de seis branquias ojigrande Hexanchus nakamurai en Colombia; sin embargo, el nombre de la especie H. vitulus fue resucitado recientemente, de modo que los tiburones ojigrandes del Atlántico son referibles a H. vitulus y los del Indo-Pacífico a H. nakamurai (Ebert et al. 2021). La presencia de la fosa de Caimán cerca de la costa caribeña de Guatemala podría explicar la ocurrencia de condrictios de aguas profundas en el área de estudio (Hacohen-Domené et al. 2016, Polanco-Vásquez et al. 2017, 2022, Avalos-Castillo et al. 2020). La fosa de Caimán se extiende desde el golfo de Honduras, al que pertenece la costa caribeña de Guatemala, hasta el sureste de Cuba. Contiene las zonas más profundas de todo el Caribe (con regiones de más de 6000 m de profundidad) y está delimitada al norte y al sur por taludes escarpados (Donnelly 1994). Los escasos reportes del tiburón de seis branquias de hocico romo en el mar Caribe reflejan bajas tasas de encuentro con las pesquerías. Se requiere un monitoreo periódico de las pesquerías para estimar su vulnerabilidad a la presión pesquera, debido a la expansión de las pesquerías costeras hacia aguas más profundas, que representa una amenaza emergente para los ensamblajes de elasmobranquios de aguas profundas (Baremore et al. 2021, Talwar et al. 2022). Por lo tanto, es fundamental aportar datos sobre su distribución y aspectos biológicos básicos para evaluar su vulnerabilidad a la sobreexplotación e informar las medidas regionales de manejo. Agradecimientos Fundación Mundo Azul agradece a los pescadores de El Quetzalito por su apoyo durante los muestreos independientes de la pesquería, y al Consejo Nacional de Áreas Protegidas (CONAP) y a la Dirección de la Normatividad de la Pesca y la Acuacultura (DIPESCA) por autorizar esta investigación. La Rufford Foundation
Ver PDF -

Primer registro del tiburón carocho Dalatias licha (Bonnaterre, 1788) en el mar Caribe guatemalteco
Primer registro del tiburón carocho, Dalatias licha (Bonnaterre, 1788), en el mar Caribe de Guatemala Julio Sánchez-Jiménez 1 , Josué Ayala-Donado 1 , María de los Ángeles Rosales Melgar 1 , Elisa M. Areano-Barillas 1 , Devanshi Kasana 2 , Mónica González-Jaramillo 3 y Juan Carlos Pérez-Jiménez 1,4 1 Fundación Mundo Azul, Guatemala, Guatemala 2 Department of Biological Sciences, Florida International University, North Miami, FL, EUA 3 Consultora independiente, San Francisco de Campeche, Campeche, México 4 El Colegio de la Frontera Sur, Ciudad Industrial, Lerma, Campeche, México Autor de correspondencia: Juan Carlos Pérez-Jiménez (jcperez@ecosur.mx) Editor asociado: Yassir Torres Resumen Las operaciones de pesca de aguas profundas se realizan cerca de la costa del Caribe de Guatemala. En un estudio para caracterizar las especies de aguas profundas presentes en el área de pesca, se registró la captura incidental de un tiburón carocho, Dalatias licha, a una profundidad de ~284-334 m, a unos 11 km al noreste de la aldea pesquera de El Quetzalito. La hembra adulta, con una longitud total de 1420 mm, presentó características morfológicas consistentes con D. licha, lo que fue confirmado mediante métodos moleculares. Se trata del primer registro de D. licha en la región del Caribe occidental, una especie catalogada en riesgo en la Lista Roja de la UICN. Con este registro, el número de especies de tiburones conocidas en el Caribe de Guatemala asciende a 25. Palabras clave Chondrichthyes; Dalatiidae; Dalatias licha; captura incidental; aguas profundas; fosa de Caimán; Guatemala El tiburón carocho (Dalatias licha) (Bonnaterre, 1788) es una especie de aguas profundas, de tamaño mediano (1820 mm de longitud total máxima, LT), mesopelágica a bentónica, que se encuentra en aguas cálidas, templadas y tropicales de las plataformas y taludes continentales e insulares externos, entre los 37 y los 1800 m de profundidad (Compagno 1984). Sin embargo, se registra con mayor frecuencia a profundidades de entre 300 y 1000 m (Castro 2011). La especie tiene una distribución circunglobal, con distribuciones discontinuas en los océanos Atlántico e Indo-Pacífico centro-occidental (Finucci et al. 2018), y se ha reportado que forma subpoblaciones regionales diferenciadas (Compagno y Cook 2005). D. licha es objeto de pesca dirigida e incidental a lo largo de su ámbito de distribución por su carne, su aceite de hígado rico en escualeno, su harina de pescado y su piel (Compagno 2016). Sin embargo, características de su historia de vida, como el crecimiento lento y una talla de madurez relativamente grande, de 1000-1200 mm de LT (Walls y Guallart 2015, Ebert et al. 2021), la hacen particularmente vulnerable a la explotación y al agotamiento rápido, como lo evidencian los declives en pesquerías dirigidas en Australia y el Atlántico nororiental (Walls y Guallart 2015, Finucci et al. 2018). Debido a los declives poblacionales significativos documentados en subpoblaciones regionales, la especie fue evaluada globalmente como Vulnerable en la Lista Roja de la Unión Internacional para la Conservación de la Naturaleza, con un declive poblacional global inferido de al menos el 30 % (Finucci et al. 2018). El ejemplar registrado de D. licha midió 1420 mm de LT y pesó 13.6 kg. El tiburón fue capturado por una embarcación de pesca artesanal (7.62 m de eslora y motor fuera de borda) el 10 de enero de 2023, con un palangre (100 anzuelos circulares #18, cebados con sábalo y lisa) en un área de pesca llamada "El Hoyo", a ~284-334 m de profundidad. El área se ubica a 11 km al noreste de El Quetzalito, Guatemala, en el margen de la fosa de Caimán. La identificación taxonómica del ejemplar se realizó siguiendo a Ebert et al. (2021). Se tomaron ochenta y dos medidas (Tabla 1) siguiendo a Compagno (1984) para su descripción. El individuo capturado presentó coloración pardo oscura, hocico corto, labios gruesos, espiráculos grandes, ausencia de aleta anal y dientes inferiores triangulares con aserraciones (Fig. 1). El ejemplar fue depositado en la colección del Centro de Estudios del Mar y Acuicultura (CEMA) de la Universidad de San Carlos de Guatemala (USAC) bajo el número de referencia 166. Se realizó un análisis molecular para confirmar la identificación de la especie. Se recolectaron muestras de tejido y se preservaron en etanol al 95 %. El ADN genómico se extrajo siguiendo el protocolo del fabricante para tejidos del kit Qiagen DNAeasy (Qiagen, Valencia, California). Se utilizó código de barras de ADN para amplificar el gen mitocondrial altamente conservado de la citocromo oxidasa I (COI), siguiendo el protocolo descrito por Cardeñosa et al. (2014). Se amplificaron secuencias parciales de COI (~450-600 pb) utilizando los cebadores universales FishCoxI F (5′ TCWACCAACCACAAGAYATYGGCAC 3′) y FishCoxI R (5′ TARACTTCWGGGTGRCCRAAGAATCA 3′), modificados de Ward et al. (2005). El perfil de la reacción en cadena de la polimerasa (PCR) fue el siguiente: 94 °C durante 2 min, seguidos de 35 ciclos de 94 °C durante 30 s, 55 °C durante 45 s y 72 °C durante 40 s, con una extensión final de 72 °C durante 10 min. Se incluyó un control negativo sin plantilla para monitorear la contaminación de los reactivos. Los productos de PCR se visualizaron en gel de agarosa al 2 %, se purificaron con Exo-SAP y se secuenciaron en un analizador de ADN ABI3730 (Thermo Fisher Scientific). Las secuencias se limpiaron y editaron con Geneious 2023.2.1 (http://www.geneious.com). Las secuencias recortadas se utilizaron como consultas de búsqueda BLAST en GenBank del National Center for Biotechnology Information (NCBI) (https://blast.ncbi.nlm.nih.gov/Blast.cgi) y en el Barcode of Life Data Systems (http://www.boldsystems.org), asignando la identidad de la especie con una similitud de secuencia >99 % con D. licha. Se obtuvo un fragmento de 567 pb del gen COI para la muestra (valor E = 0.0). La secuencia fue depositada en GenBank bajo el número de acceso OQ591896. La literatura contiene información limitada sobre la distribución regional, las pesquerías, la ecología y la biología de esta especie en el Atlántico occidental. En el Atlántico occidental, la especie fue reportada por primera vez en el golfo de Maine, océano Atlántico norte (Bigelow y Schroeder 1948), seguida de Oregon, en el norte del golfo de México (Bigelow et al. 1955). Posteriormente hubo registros fotográficos en Bermudas y Gran Caimán (Clark y Kristof 1990) y, más recientemente, la especie ha sido reportada en el Atlántico sur, en Brasil (Soto y Mincarone 2001), y en el sur del mar Caribe, en Venezuela (Tagliafico et al. 2007) (Tabla S1). Tabla 1. Medidas morfométricas de Dalatias licha del mar Caribe de Guatemala. Medida Medidas (mm) % de la longitud total Longitud total 1420 Longitud precaudal 1140 80.28 Longitud predorsal segunda 975 68.66 Longitud predorsal primera 505 35.56 Longitud de la cabeza 280 19.71 Longitud prebranquial 215 15.14 Longitud preespiracular 120 8.45 Longitud preorbital 90 6.33 Longitud prepectoral 280 19.71 Longitud prepélvica 835 58.80 Longitud hocico-cloaca 920 64.78 Espacio interdorsal 340 23.94 Espacio dorsal-caudal 135 9.50 Espacio pectoral-pélvico 405 28.52 Espacio pélvico-caudal 170 11.97 Longitud cloaca-caudal 500 35.21 Longitud prenarial 35 2.46 Longitud preoral 62 4.36 Longitud del ojo 55 3.87 Altura del ojo 25 1.76 Longitud interbranquial 70 4.92 Altura de la primera hendidura branquial 30 2.11 Altura de la segunda hendidura branquial 30 2.11 Altura de la tercera hendidura branquial 32 2.25 Altura de la cuarta hendidura branquial 32 2.25 Altura de la quinta hendidura branquial 37 2.60 Margen anterior de la pectoral 135 9.50 Longitud radial de la pectoral 155 10.91 Base de la pectoral 80 5.63 Margen interno de la pectoral 70 4.92 Margen posterior de la pectoral 90 6.33 Altura de la pectoral 150 10.56 Longitud de la pectoral 125 8.80 Margen dorsal de la caudal 281 19.78 Margen preventral de la caudal 130 9.15 Margen postventral superior de la caudal 230 16.19 Margen subterminal de la caudal 40 2.81 Ancho subterminal de la caudal 60 4.22 Margen terminal de la caudal 62 4.36 Lóbulo terminal de la caudal 65 4.57 Longitud de la primera dorsal 140 9.85 Margen anterior de la primera dorsal 130 9.15 Base de la primera dorsal 68 4.78 Altura de la primera dorsal 52 3.66 Margen interno de la primera dorsal 70 4.92 Margen posterior de la primera dorsal 60 4.22 Longitud de la segunda dorsal 150 10.56 Margen anterior de la segunda dorsal 125 8.80 Base de la segunda dorsal 90 6.33 Altura de la segunda dorsal 80 5.63 Margen interno de la segunda dorsal 70 4.92 Margen posterior de la segunda dorsal 78 5.49 Longitud de la pélvica 190 13.38 Margen anterior de la pélvica 140 9.85 Base de la pélvica 130 9.15 Altura de la pélvica 100 7.04 Longitud del margen interno de la pélvica 82 5.77 Longitud del margen posterior de la pélvica 135 9.50 Altura de la cabeza 130 9.15 Altura del tronco 170 11.97 Altura del abdomen 195 13.73 Altura de la cola 80 5.63 Altura del pedúnculo caudal 45 3.16 Punto medio de la primera dorsal-origen de la pélvica 280 19.71 Punto medio de la pélvica-inserción de la primera dorsal 350 24.64 Punto medio de la pélvica-origen de la segunda dorsal 20 1.40 Longitud de la boca 60 4.22 Ancho de la boca 105 7.39 Longitud del surco labial superior 20 1.40 Longitud del surco labial inferior 25 1.76 Ancho de la narina 15 1.05 Espacio internarial 40 2.81 Longitud del lóbulo nasal anterior 15 1.05 Espacio interorbital 70 4.92 Longitud del espiráculo 20 1.40 Espacio ojo-espiráculo 25 1.76 Ancho de la cabeza 180 12.67 Ancho del tronco 200 14.08 Ancho del abdomen 200 14.08 Ancho de la cola 65 4.57 Ancho del pedúnculo caudal 30 2.11 Figura 1. Hembra adulta de Dalatias licha de 1420 mm de longitud total. a) vista lateral, b) vista dorsal, c) dientes de la mandíbula superior, d) dientes de la mandíbula inferior. Antes del presente estudio, el ejemplar de Venezuela era el único registro documentado del mar Caribe y el más reciente del Atlántico occidental. Los ejemplares registrados en el Caribe fueron ambos hembras maduras de la misma talla (1420 mm de LT), por encima de la talla de madurez (1170-1200 mm de LT) (Castro 2011, Ebert et al. 2021). Adicionalmente, se han encontrado 14 ejemplares del Atlántico occidental en colecciones ictiológicas, principalmente del norte del golfo de México y del golfo de Maine (Tabla S2). Durante el mismo viaje de pesca se capturaron incidentalmente, junto con D. licha, otras dos especies de aguas profundas: la quimera Neoharriotta carri Bullis y Carpenter, 1966 (663-1090 mm de LT) y el tiburón gato de silla blanca Scyliorhinus hesperius Springer, 1966 (440-480 mm de LT). Ambas especies han sido reportadas previamente en el área de estudio (Hacohen-Domené et al. 2016, Polanco-Vásquez et al. 2017), además del tiburón de siete branquias de hocico agudo Heptranchias perlo (Bonnaterre, 1788), documentado recientemente en la misma aldea pesquera (El Quetzalito) del Caribe de Guatemala (Hacohen-Domené et al. 2017). La presencia de la fosa de Caimán cerca de la costa caribeña de Guatemala podría explicar el registro de estas especies de tiburones de aguas profundas. La fosa de Caimán es una cuenca lineal estrecha y profunda, ubicada inmediatamente al norte de la Elevación de Nicaragua, notable por ser un sitio de expansión contemporánea del fondo marino. Se extiende desde el golfo de Honduras hasta el sureste de Cuba. Contiene las zonas más profundas de todo el Caribe (con regiones de más de 6000 m de profundidad) y está delimitada al norte y al sur por paredes escarpadas (Donnelly 1994). Con el registro de D. licha, el número de especies de tiburones conocidas en el Caribe de Guatemala aumentó a 25. Los escasos reportes de esta especie en el mar Caribe reflejan que las tasas actuales de encuentro en la pesquería son bajas; sin embargo, la expansión de las pesquerías costeras hacia aguas más profundas representa una amenaza emergente para los ensamblajes v
Ver PDF -

Nuevo registro y extensión de distribución del tiburón espinoso de piel áspera (Cirrhigaleus asper) en el mar Caribe
Nuevo registro y extensión de rango del tiburón espinudo Cirrhigaleus asper en el Mar Caribe 1 Fundación Mundo Azul, Blvd. Rafael Landívar 10-05, Paseo Cayalá Zona 16, Ciudad de Guatemala, Guatemala 2 Wildlife Conservation Society, Avenida 15 de Marzo, Casa #3, Flores Petén, Guatemala 3 Departamento de Biología, Facultad de Ciencias y Humanidades, Universidad del Valle de Guatemala, 18 Av. 11-95 Zona 15, Vista Hermosa III, Ciudad de Guatemala, Guatemala 4 Instituto Politécnico Nacional, Centro Interdisciplinario de Ciencias Marinas, 23096, La Paz, México 5 Laboratorio de Biología Molecular (BIOMOL), Centro de Programas Internacionales y Estudios de Sostenibilidad, Universidad Veritas, San José, Costa Rica 6 Sala de Colecciones Biológicas, Facultad de Ciencias del Mar, Larrondo 1281, Universidad Católica del Norte, Coquimbo, Chile. Autor de correspondencia: anahacohen@gmail.com Resumen Este estudio constituye el primer registro y una ampliación de la distribución del tiburón espinoso de piel áspera (Cirrhigaleus asper) en el mar Caribe. Se capturó un total de tres ejemplares hembra maduros por pescadores artesanales entre marzo y mayo de 2016 en la comunidad costera de El Quetzalito, Izabal, Guatemala. La longitud total de los tiburones osciló entre 1,110 y 1,280 mm, lo que representa la mayor longitud total reportada hasta la fecha para esta especie. Palabras clave Especie de aguas profundas, elasmobranquio, Squalidae, Guatemala Introducción La familia Squalidae (tiburones galludo) incluye dos géneros: Cirrhigaleus (Tanaka, 1912), con tres especies, y Squalus (Linnaeus, 1758), con 26 especies (Ebert et al. 2015). Esta familia se distribuye a nivel mundial en mares templados y tropicales, con preferencia por ambientes profundos (>50 m), donde se alimenta de peces bentónicos e invertebrados (Compagno 2002, Compagno et al. 2005, Ebert et al. 2015). En el Atlántico se reportan once especies (Compagno 2002, Ebert et al. 2015, Pfleger et al. 2018, Veríssimo et al. 2016, Viana et al. 2016, Finucci et al. 2020a). El tiburón espinoso de piel áspera, Cirrhigaleus asper Merrett, 1973, fue descrito por primera vez por Merrett (1973) en el océano Índico occidental ecuatorial, a partir de un holotipo macho maduro de 901 mm de longitud total (LT). Esta especie ha sido reportada en el océano Atlántico sur, en el océano Índico occidental y central, y en el océano Pacífico central (islas Hawái). En el Atlántico occidental, C. asper ha sido reportada desde Carolina del Norte hasta Florida, en el golfo de México y en el suroeste de Brasil, sin registros previos en el mar Caribe (Compagno 2002, Castro 2011, Ebert et al. 2015, Rincón et al. 2017, Del Moral-Flores et al. 2018). Según Ebert et al. (2015) y Finucci et al. (2020b), C. asper habita plataformas continentales y taludes insulares de mares cálidos templados a tropicales, entre 0 y 1,370 m de profundidad. Sin embargo, también puede observarse en desembocaduras de ríos y bahías exteriores (Compagno 1984, Ebert et al. 2015). La información biológica de C. asper es deficiente. Se desconoce la edad de madurez de esta especie vivípara con saco vitelino, así como su longevidad y periodo de gestación (Finucci et al. 2020b). Sin embargo, la talla de madurez ocurre entre 89-118 cm en hembras y 85-90 cm en machos, con una talla de nacimiento de 25-28 cm y una fecundidad de 18-22 crías (Ebert et al. 2013, Finucci et al. 2020b). En cuanto a su estado de conservación, C. asper está clasificada como “Datos Insuficientes” por la Unión Internacional para la Conservación de la Naturaleza (UICN), debido a la escasa información disponible para evaluar los riesgos de extinción con base en su distribución y tendencias poblacionales (Finucci et al. 2020b). Este reporte da cuenta de un nuevo registro y una ampliación de la distribución de C. asper, y aporta la primera evidencia científica de la presencia de esta especie frente a las costas de Guatemala, en el mar Caribe, con base en tres ejemplares hembra capturados como captura incidental (bycatch) de la pesca artesanal. Materiales y Métodos Ejemplares examinados y morfometría Tres ejemplares de Cirrhigaleus asper fueron capturados incidentalmente por pescadores artesanales de la comunidad costera de El Quetzalito, Izabal, Guatemala, en las coordenadas 15°52.374 N, 88°18.712 W (ver Figura 1: Área de estudio y sitio de captura). Dos ejemplares fueron capturados el 20 de marzo de 2016 utilizando una red de trasmallo de fondo de 1,000 m de longitud, con malla de 3.5 pulgadas y un solo paño. Un tercer ejemplar fue capturado el 18 de mayo de 2016 utilizando un palangre de 2,000 m de longitud con 200 anzuelos (calibre #16). Los tres ejemplares fueron capturados a una profundidad aproximada de 200 m, con base en la longitud conocida del arte de pesca utilizado. Todos los ejemplares fueron examinados e identificados utilizando guías de identificación (Compagno 1984, Compagno et al. 2005, Ebert et al. 2015). En cuanto a la morfometría, se registró un total de 76 medidas (siguiendo el protocolo de Compagno 2002) para el ejemplar Id_215 (Tabla 1; Fig. 2a). Adicionalmente, se recolectó una muestra de tejido para identificación genética únicamente del ejemplar Id_235. Lamentablemente, no fue posible depositar ningún ejemplar en un museo o colección académica debido a la decisión del pescador de utilizar la carne. Identificación genética El ADN fue extraído utilizando el kit Wizard Genomic DNA Purification (PROMEGA®, Promega Inc., Madison, WI). La subunidad 1 de la citocromo oxidasa (COI o CO1) fue amplificada mediante PCR utilizando los siguientes cebadores: FISH F2: 5’TCGACTAATCATAAAGATATCGGCAC’ y FISH R2: 5’ACTTCAGGGTGACCGAAGAATCAGAA3’ (Ward et al. 2005). Las amplificaciones se realizaron en un volumen de PCR de 15 μL con buffer PCR 10X, MgCl2 25 mM, dNTPs 10 mM, 10 μM de cada cebador, 5 unidades de polimerasa Dream Taq (Thermo Scientific™) y 1 μL de ADN. La PCR se realizó en un termociclador SimpliAmp (Applied Biosystem, EE. UU.). Se realizó un paso inicial de desnaturalización a 95 °C durante 2 min, seguido de 30 ciclos de 30 s a 94 °C, 30 s a 55 °C y 1 min a 72 °C, seguido de un paso final de extensión de 10 min a 72 °C. Los productos de PCR fueron enviados al laboratorio de clonación molecular (MCLAB) en Estados Unidos para secuenciación Sanger en un analizador genético ABI 3730 XL, tanto en dirección directa como inversa. Las secuencias directas e inversas fueron editadas y alineadas utilizando el software GENEIOUS v10.2.3 para resolver ambigüedades y confirmar las bases nucleotídicas. Las divergencias de secuencia se calcularon utilizando un modelo de distancia Kimura de dos parámetros (K2P) (Kimura 1980). Se estimó un árbol de unión de vecinos (Neighbor-joining, NJ) de distancias K2P para representar la divergencia entre las especies de Cirrhigaleus a partir de la secuencia del gen CO1 obtenida de Barcode of Life Data Systems (BOLD) (Ratnasingham & Hebert 2007) y de GenBank del NCBI. El árbol NJ se generó en MEGAX (Kumar et al. 2018) con 1000 réplicas. Figura 1. Área de estudio y localidad de captura (x) de Cirrhigaleus asper en la zona costera de El Quetzalito, Izabal, Guatemala. Tabla 1. Medidas morfométricas (mm) del espécimen hembra de Cirrhigaleus asper (Id_215) capturado por pescadores artesanales entre marzo y mayo de 2016 en la zona costera de El Quetzalito, Izabal, Guatemala. Resultados y discusión Las especies del género Cirrhigaleus se distinguen de las especies de Squalus por presentar un lóbulo secundario muy alargado y por formar barbillas nasales que se extienden hasta el margen anterior de la boca, mientras que las especies del género Squalus tienen pliegues nasales anteriores con un lóbulo secundario corto, sin formar barbillas nasales (Compagno et al. 2005). Las especies del género Cirrhigaleus evidencian una longitud similar en ambas aletas dorsales, mientras que en las especies de Squalus la segunda aleta dorsal es más pequeña y baja que la primera aleta dorsal (Compagno et al. 2005). En las especies de Cirrhigaleus, la espina de la segunda aleta dorsal es de longitud igual a la espina de la primera aleta dorsal. En contraste, las especies de Squalus muestran una espina de la segunda aleta dorsal más larga que la de la primera aleta dorsal. En general, el cuerpo de las especies de Cirrhigaleus es robusto y marcadamente jorobado dorsalmente, en comparación con el género Squalus, cuyos miembros evidencian un cuerpo fusiforme arqueado dorsalmente a lo largo de toda su longitud (Viana et al. 2016). Los especímenes fueron identificados como Cirrhigaleus asper debido a la presencia de un cuerpo robusto cubierto de piel áspera, un hocico corto y redondeado, y una cabeza ancha y plana. El cuerpo mostró una pigmentación blanca en el vientre y un color café claro en la superficie dorsal. Los márgenes de ambas aletas dorsales eran blancos y la segunda aleta dorsal era casi tan grande como la primera, observándose una espina fuerte y larga en ambas aletas dorsales. El origen de la primera aleta dorsal se ubicaba detrás de las puntas posteriores de la aleta pectoral (Compagno et al. 2005; Fig. 2a, b). Adicionalmente, los especímenes examinados presentaban narinas grandes y surcos labiales superiores de boca amplia, más largos que la longitud del surco labial inferior (Fig. 2a). Finalmente, los especímenes presentaron pliegues nasales anteriores con barbillas cortas, una característica distintiva que diferencia a C. asper de sus congéneres Cirrhigaleus barbifer Tanaka, 1912 y Cirrhigaleus australis White, Last & Stevens, 2007 (Ebert et al. 2015). Los especímenes presentaron las siguientes medidas morfométricas: Id_215: 1,160 mm de longitud total (LT), 1,060 mm de longitud precaudal (LPC), 960 mm de longitud furcal (LF), hembra madura (número de código = Id_215) (Fig. 2a); Id_216: 1,100 mm LT, 1,030 mm LPC, 970 mm LF, hembra madura (número de código = Id_216); Id_235: 1,280 mm LT, 1,200 mm LPC, 1,080 mm LF, hembra madura (número de código = Id_235) (Fig. 2b). Figura 2. Especímenes de Cirrhigaleus asper: a) Id_215 (1,160 mm LT, hembra madura); b) Id_235 (1,280 mm LT, hembra madura); c) Id_235, árbol filogenético generado por el método de unión de vecinos de C. asper y sus especies relacionadas, inferido a partir de la secuencia del gen (COI). Las secuencias de COI editadas tuvieron una longitud de 573 pb para el espécimen identificado como Id_235, procedente de Guatemala, en la costa caribeña (número de acceso GenBank MN982926). La secuencia es idéntica a un espécimen de referencia disponible de C. asper (DSFSF327-09), y difiere en solo un par de bases de las otras secuencias identificadas como C. asper obtenidas de GenBank (JF43139) y de otros dos especímenes de referencia de C. asper (SAIAE071-14 y CNSHK146-08). Sin embargo, la secuencia CO1 de Id_235 difirió en 23 sustituciones respecto a dos especímenes de referencia de C. australis (White et al. 2007) (FOA137-04 y FOAL645-10), y en 24 sustituciones de pares de bases respecto a un espécimen de C. barbifer (Kempster et al. 2013) (FOAE068-06). Se utilizó una secuencia (KC349854) de Squalus crassispinus Last, Edmunds & Yearsley, 2007 (FOAFOO3-07) como grupo externo. Los porcentajes de identidad se representan y respaldan para cada rama del árbol NJ (Fig. 2c). Estos especímenes confirman el primer registro del tollo áspero C. asper en el mar Caribe, frente a Guatemala. La especie ha sido reportada en el Atlántico Norte occidental, el golfo de México (Campeche), la costa sur de Brasil y la costa occidental de Venezuela (península de Paraguaná) (Castro 1983, Compagno 2002, Fischer et al. 2006, Rincón et al. 2017, Del Moral et al. 2018, Ehemann et al. 2019). El tollo áspero es capturado incidentalmente como resultado de la pesca de arrastre, la pesca con palangre y la pesca de blanquillo (tilefish) en la costa sureste de Estados Unidos (Compagno 2002). Según Compagno (1984) y Castro (2011), C. asper no tiene importancia comercial hasta la fecha. Sin embargo,
Ver PDF -

Primer registro del tiburón martillo cuchara (Sphyrna media) y nuevos registros del tiburón martillo gigante (Sphyrna mokarran) en el Pacífico guatemalteco
Primer registro del tiburón martillo cuchara (Sphyrna media) y nuevos registros del tiburón martillo gigante (Sphyrna mokarran) en el Pacífico de Guatemala Ana Cristina Hérnandez a , Julio Sánchez-Jiménez a , María de los Ángeles Rosales-Melgar a , Elisa M. Areano-Barillas a , Juan Carlos Pérez-Jiménez a,b, * a Fundación Mundo Azul, Km 21.5 carretera a Villa Canales, Guatemala, Guatemala b El Colegio de la Frontera Sur, Av. Rancho Polígono 2-A, Ciudad Industrial, Lerma, Campeche CP 24500, México * Autor de correspondencia: Fundación Mundo Azul, Km 21.5 carretera a Villa Canales, Guatemala, Guatemala. Correo electrónico: (J.C. Pérez-Jiménez). Regional Studies in Marine Science 84 (2025) 104122. Aceptado el 7 de marzo de 2025. Disponible en línea el 8 de marzo de 2025. Resumen Se reporta un tiburón martillo cuchara juvenil (Sphyrna media) y cuatro tiburones martillo gigante juveniles (Sphyrna mokarran) capturados con palangre (<30 m de profundidad) por pesquerías de pequeña escala frente a las costas de Buena Vista y Sipacate, en el Pacífico de Guatemala. Estas especies están categorizadas como En Peligro Crítico en la Lista Roja de la UICN, principalmente debido a la sobrepesca. Todos los ejemplares fueron juveniles: un macho de S. media (71 cm de LT) y cuatro S. mokarran, incluyendo una hembra (114 cm de LT) y tres machos (79.5, 122 y 149.5 cm de LT). Los ejemplares de S. mokarran registrados en nuestro estudio son los más pequeños reportados hasta la fecha para la región del Pacífico oriental. El ejemplar de S. media es el primero registrado en el Pacífico de Guatemala, lo que eleva a cuatro el número de especies de tiburón martillo y a dieciséis el número total de especies de tiburones registradas en el Pacífico guatemalteco. Palabras clave Sphyrnidae; En Peligro Crítico; tiburones poco comunes; Pacífico oriental tropical; pesquerías artesanales 1. Introducción Los tiburones martillo (familia Sphyrnidae), llamados así por la expansión lateral de la cabeza, comprenden tiburones que habitan aguas tropicales y templadas de todo el mundo (Gilbert, 1967); sin embargo, las especies pequeñas, con excepción de Eusphyra blochii, están restringidas a las aguas del continente americano (Ebert et al., 2021). El tiburón martillo común (Sphyrna lewini Griffith y Smith, 1834) y el tiburón martillo liso (Sphyrna zygaena Linnaeus, 1758) son comunes en el Pacífico oriental (Martínez-Ortíz et al., 2007; Galeana-Villaseñor et al., 2009; Pérez-Jiménez, 2014). El tiburón martillo gigante (Sphyrna mokarran Rüppell, 1837) ha sido registrado en el Pacífico central mexicano (Castillo-Geniz et al., 2016), Panamá y Guatemala (Guzman et al., 2019; Avalos-Castillo y Santana-Morales, 2021), y el cornuda cabeza de pala (Sphyrna tiburo Linnaeus, 1758), el cornuda coronada (Sphyrna corona Springer, 1940) y el tiburón martillo cuchara (Sphyrna media Springer, 1940) han sido registrados frente a Colombia, Panamá y México (Castillo-Geniz, 2001; Torres-Huerta, 2008; Rico-Mejia y Rueda, 2007; Guzman et al., 2019). A lo largo de la costa del Pacífico de Guatemala, el tiburón capturado con mayor frecuencia es S. lewini (Ixquiac-Cabrera et al., 2009; Avalos-Castillo y Santana-Morales, 2021). Sphyrna mokarran y S. zygaena también han sido reportados en los desembarques (Ixquiac-Cabrera et al., 2009). Cabe destacar que existe un solo registro previamente documentado de S. mokarran (Avalos-Castillo y Santana-Morales, 2021); sin embargo, no se registraron datos de sexo ni de talla. Nuestro estudio busca aportar el primer registro verificado de S. media y nuevos registros de S. mokarran en aguas del Pacífico de Guatemala. Sphyrna media es un tiburón martillo de talla pequeña (<150 cm de longitud total, LT) distribuido en el Pacífico oriental desde el golfo de California, México, hasta el norte de Perú, y en el Atlántico occidental desde Panamá hasta el sur de Brasil. Habita aguas de plataformas continentales, desde la zona costera hasta los 100 m de profundidad (Compagno, 1984; Castro, 2011). En comparación, S. mokarran es un tiburón grande (610 cm de LT), costero y pelágico semioceánico, de amplia distribución en aguas tropicales y templadas cálidas (Compagno, 1984; Castro, 2011). Sphyrna media es capturada en pesquerías que utilizan palangres de fondo, redes agalleras y línea de mano (Compagno, 1984; Kyne et al., 2012), que por lo general carecen de manejo y operan en toda su área de distribución. La disminución del número de registros durante las últimas décadas y la contracción de su ámbito de distribución en algunas áreas indican que este tiburón ha sufrido una reducción poblacional tanto en el Pacífico como en el Atlántico (Pollom et al., 2020). Los registros son escasos en el resto del Pacífico oriental (Pérez-Jiménez, 2014; Guzman et al., 2019). Por lo tanto, se infiere que S. media ha experimentado un declive poblacional del 80 % debido a los altos niveles de pesca, lo que la ha llevado a la categoría de En Peligro Crítico en la Lista Roja de la UICN (Pollom et al., 2020). Sphyrna mokarran es capturada a nivel mundial como especie objetivo y como captura incidental en pesquerías costeras y pelágicas de palangre, cerco y red agallera, de gran y pequeña escala, y con frecuencia se retiene por sus aletas (Castro, 2011; Kyne et al., 2012; Ebert et al., 2021). Sphyrna mokarran ha mostrado declives significativos en varias regiones de su ámbito de distribución, y su población ha disminuido un 80 % en tres generaciones; en consecuencia, ha sido categorizada como En Peligro Crítico en la Lista Roja de la UICN (Rigby et al., 2019). 2. Registros y discusión La presencia histórica de S. media y S. mokarran en el Pacífico oriental está bien documentada en colecciones ictiológicas de México (principalmente en el golfo de California), Costa Rica y Panamá (Tabla 1). Es importante resaltar la ausencia de registros recientes en el golfo de California, México, a pesar de los intensos muestreos de monitoreo de desembarques de las últimas décadas (Pérez-Jiménez, 2014). Antes de nuestro estudio, los registros más recientes de S. media databan de 2009–2010 frente a Panamá (Vega et al., 2023), y los de S. mokarran de 2006–2014 en el Pacífico central mexicano (Castillo-Geniz et al., 2016) (Tabla 2). Tabla 1. Ejemplares de Sphyrna media (n = 40) y Sphyrna mokarran (n = 30) del Pacífico oriental preservados en colecciones ictiológicas. NA: no disponible. SIO = Scripps Institution of Oceanography; LACM = Natural History Museum of Los Angeles County; USNM = Smithsonian Institution National Museum of Natural History; FMNH = Field Museum of Natural History; IBUNAM = Colección Nacional de Peces, UNAM; CAS = California Academy of Sciences; YPM = Peabody Museum of Natural History; AMNH = American Museum of Natural History; CMN = Canadian Museum of Nature. En nuestro estudio realizamos monitoreo de desembarques en las comunidades pesqueras de la costa central del Pacífico de Guatemala. El ejemplar de Sphyrna media fue desembarcado en la comunidad pesquera de Buena Vista, y los cuatro ejemplares de S. mokarran (incluido el reportado por Avalos-Castillo y Santana-Morales, 2021) fueron desembarcados en Sipacate por embarcaciones artesanales (de fibra de vidrio con motor fuera de borda, de 7.5–9 m de eslora), que se dirigen a teleósteos y rayas con palangres de fondo (anzuelos tipo J o Eagle Claw de media circunferencia, de 3–6 cm de altura) en la plataforma continental, a menos de 30 m de profundidad. El ejemplar de Sphyrna media fue identificado taxonómicamente siguiendo las descripciones de Compagno (1984), Castro (2011) y Ebert et al. (2021): cabeza moderadamente ancha, arqueada anteriormente y en forma de mazo, con escotaduras mediales y laterales débiles en su borde anterior (Fig. 1). Utilizamos métodos moleculares para confirmar la identificación visual, debido a la estrecha similitud morfológica con S. corona. Recolectamos una muestra de músculo de S. media para el análisis genético que confirmara la identidad de la especie. Las muestras de tejido se conservaron en etanol al 95 % y la extracción de ADN total se realizó con el kit Qiagen DNeasy Blood and Tissue siguiendo el protocolo del fabricante (Qiagen, Valencia, CA, EUA). Se amplificó un fragmento de 772 pares de bases (pb) de la región mitocondrial COI y se corrieron tres réplicas independientes utilizando los cebadores FishCoxI F1 (5´TCWACCAACCACAAAGAYATYGGCAC) y FishCoxI R1 (TARACTTCWGGGTGRCCRAAGAATCA), modificados de Ward et al. (2005). La reacción en cadena de la polimerasa (PCR) se realizó de la siguiente manera: 94 ˚C durante 2 min, 35 ciclos de 30 s a 94 ˚C, 55 ˚C durante 45 s y 72 ˚C durante 40 s, seguidos de una extensión final de 72 ˚C durante 10 min. Los productos de PCR amplificados exitosamente se purificaron con Exo-SAP (Thermo Scientific) y se secuenciaron en un ABI 3500. Todas las secuencias fueron editadas, revisadas manualmente y alineadas con GeneiousPrime (http://www.geneious.com). Se realizó una búsqueda BLAST en GenBank para comparar las secuencias con todos los ejemplares disponibles, incluidas posibles coincidencias con S. corona. Dado que no había secuencias de S. media disponibles en GenBank, la identificación de la especie se validó utilizando muestras de S. media confirmadas genéticamente procedentes de Colombia y Panamá. Los ejemplares de Sphyrna mokarran fueron identificados taxonómicamente siguiendo las descripciones de Compagno (1984), Castro (2011) y Ebert et al. (2021): margen anterior de la cabeza casi recto y con una escotadura media, y primera aleta dorsal muy alta y falcada (Fig. 2). Medimos la longitud total (LT) en centímetros de todos los ejemplares con una cinta métrica. Fig. 1. Tiburón martillo cuchara Sphyrna media (macho de 71 cm de LT), A) vista lateral, B) vista dorsal de la cabeza. El macho de S. media midió 71 cm de LT y fue desembarcado el 15 de marzo de 2024 (Fig. 1). El primer S. mokarran registrado fue un macho (122 cm de LT) desembarcado el 12 de febrero de 2020 (el documentado por Avalos-Castillo y Santana-Morales, 2021); el segundo registro fue una hembra (114 cm de LT) desembarcada el 5 de enero de 2024 (Fig. 2A, B); el tercer registro fue un macho (149.5 cm de LT) desembarcado el 5 de marzo de 2024 (Fig. 2C), y el cuarto registro fue un macho (79.5 cm de LT) desembarcado el 5 de junio de 2024. El S. mokarran más pequeño (79.5 cm de LT) fue un neonato o un joven del año; los demás ejemplares de S. mokarran y el de S. media eran juveniles. La talla de madurez de los machos de S. media se ha estimado entre 83 cm de LT (Castro, 2011) y 100 cm de LT (Ebert et al., 2021). Los machos de Sphyrna mokarran maduran entre los 234 y 269 cm de LT, y las hembras entre los 250 y 300 cm de LT (Compagno, 1984). Adicionalmente, la talla de nacimiento de S. mokarran es de 50–70 cm de LT (Compagno, 1984; Ebert et al., 2021). Fig. 2. Tiburón martillo gigante Sphyrna mokarran, A) vista lateral de un macho (114 cm de LT), B) vista dorsal de un macho (114 cm de LT), C) vista dorsal de un macho (149.5 cm de LT). Con la inclusión de nuestro registro de S. media, el número de especies de tiburón martillo registradas en el Pacífico de Guatemala asciende ahora a cuatro, incluyendo S. lewini, S. zygaena y S. mokarran (Ixquiac-Cabrera et al., 2009; Avalos-Castillo y Santana-Morales, 2021), y el número total de especies de tiburones de la costa del Pacífico guatemalteco aumentó a 16. La relevancia del registro de S. media radica en la escasez reciente de registros de esta especie en el Pacífico oriental (Tabla 2). Además, las tallas de S. mokarran reportadas en nuestro estudio son las más pequeñas registradas para la región del Pacífico oriental, lo que subraya la importancia del monitoreo continuo de los desembarques a lo largo de la costa del Pacífico de Guatemala. Tabla 2. Datos biológicos de Sphyrna media (n = 26) y Sphyrna mokarran (n = 263) del Pacífico oriental, registrados en desembarques pesqueros desde 1999. NA: no disponible. País Años de los r
Ver PDF -

Riesgo de extinción, capturas reconstruidas y manejo de peces condrictios en el océano Atlántico centro-occidental
Riesgo de extinción, capturas reconstruidas y manejo de peces condrictios en el océano Atlántico centro-occidental Brendan S. Talwar, Brooke Anderson, Cristopher G. Avalos-Castillo, María del Pilar Blanco-Parra, Alejandra Briones, Diego Cardeñosa, John K. Carlson, Patricia Charvet, Charles F. Cotton, Zoe Crysler, Danielle H. Derrick, Michael R. Heithaus, Katelyn B. Herman, Olga Koubrak, David W. Kulka, Peter M. Kyne, Oscar M. Lasso-Alcalá, Paola A. Mejía-Falla, Jorge Manuel Morales-Saldaña, Beatriz Naranjo-Elizazu, Andrés F. Navia, Nathan Pacoureau, Juan Carlos Pérez-Jiménez, Riley A. Pollom, Cassandra L. Rigby, Gabriela Sofía Rincón-Vargas, Rima W. Jabado, Nicholas K. Dulvy y colaboradores Fish and Fisheries, 2022. DOI: 10.1111/faf.12675. Recibido el 24 de enero de 2022; revisado el 30 de abril de 2022; aceptado el 2 de mayo de 2022. Correspondencia: Brendan S. Talwar, Institute of Environment, Department of Biological Sciences, Florida International University, 3000 NE 151st Street, North Miami, FL 33181, EUA. Correo electrónico: talwar.brendan@gmail.com Financiamiento: Shark Conservation Fund. Resumen Los peces condrictios se encuentran entre los vertebrados más amenazados del planeta, ya que muchas especies tienen historias de vida lentas que son superadas por la intensa presión pesquera. El océano Atlántico centro-occidental, que incluye el Gran Caribe, es un punto caliente de biodiversidad y abundancia de condrictios, pero se ha caracterizado por pesquerías extensivas de tiburones y rayas y por la falta de datos suficientes para un manejo y una conservación eficaces. Para orientar la investigación y las decisiones de manejo futuras, analizamos los patrones de riesgo de extinción, las capturas reconstruidas y el grado de participación en el manejo en esta región. Resumimos el riesgo de extinción de 180 tiburones, rayas y quimeras, incluidas 66 especies endémicas y 14 casi endémicas, utilizando las evaluaciones contemporáneas de la Lista Roja de la UICN. Más de un tercio (35.6 %) fueron evaluadas como Vulnerable, En Peligro o En Peligro Crítico, principalmente debido a la sobrepesca. Las capturas reconstruidas de 1950 a 2016 alcanzaron su máximo en 1992 y disminuyeron un 40.2 % a partir de entonces. Estados Unidos, Venezuela y México fueron responsables de la mayor parte de las capturas de la región y albergaron las mayores proporciones de las distribuciones regionales de las especies amenazadas, en gran medida por contar con hábitats costeros extensos dentro de sus zonas económicas exclusivas. La cantidad y la resolución taxonómica de los datos de desembarques pesqueros fueron deficientes en buena parte de la región, y las regulaciones nacionales variaron ampliamente entre jurisdicciones. Las pesquerías de aguas profundas representan una amenaza emergente, aunque muchos condrictios de aguas profundas cuentan actualmente con un refugio más allá de las profundidades que alcanza la mayoría de las pesquerías. Se requieren la colaboración regional y un manejo eficaz y aplicable, sustentado en datos pesqueros más completos —en particular de las pesquerías de pequeña escala—, para proteger y recuperar las especies amenazadas y garantizar pesquerías sostenibles. Palabras clave pesquerías, Lista Roja de la UICN, política marina, rayas, tiburones, amenazas INTRODUCCIÓN La pesca ha superado el ritmo de las historias de vida lentas de muchos tiburones y sus parientes (clase Chondrichthyes, en adelante «tiburones y rayas»; Cortés, 2000; Worm et al., 2013) y ha llevado a que se estime que un tercio (37.5 %) de los tiburones y rayas esté amenazado de extinción (Dulvy, Pacoureau, et al., 2021). Los tiburones y rayas oceánicos son un ejemplo notable: entre 1970 y 2018, un aumento de 18 veces en la presión pesquera relativa redujo su abundancia global en un 71 % (Pacoureau et al., 2021). Los tiburones que habitan arrecifes de coral están amenazados de forma similar, y es probable que la pesca sea responsable de su ausencia en casi el 20 % de los arrecifes muestreados a nivel mundial (MacNeil et al., 2020). La disminución de las poblaciones de tiburones y rayas podría tener consecuencias a nivel de ecosistema (Burkholder et al., 2013; Estes et al., 2016; Ferretti et al., 2010), ya que muchos de estos peces son depredadores tope o mesodepredadores de amplio desplazamiento que pueden afectar los procesos ecosistémicos mediante la depredación y los efectos de riesgo asociados, la competencia, el transporte de nutrientes y la bioturbación (Flowers et al., 2021; Heithaus et al., 2008, 2010; Heupel et al., 2014). En las últimas décadas, la creciente preocupación por los impactos de la pesca sobre los tiburones y las rayas dio origen a numerosas iniciativas destinadas a frenar o revertir los declives poblacionales a nivel nacional e internacional (Shiffman y Hammerschlag, 2016). En 1991, por ejemplo, se fundó el Grupo de Especialistas en Tiburones (SSG) de la Comisión de Supervivencia de Especies (CSE) de la Unión Internacional para la Conservación de la Naturaleza (UICN) para promover el uso sostenible y la conservación de tiburones y rayas (Fowler et al., 2005) y, en 1993, Estados Unidos implementó su Plan de Manejo Pesquero para tiburones en el océano Atlántico (NMFS, 1993). Adicionalmente, a finales de la década de 1990, la Organización de las Naciones Unidas para la Alimentación y la Agricultura (FAO) desarrolló el Plan de Acción Internacional para la Conservación y Ordenación de los Tiburones (IPOA–Sharks), que recomendaba a los países crear e implementar sus propios Planes de Acción Nacionales para tiburones y rayas (NPOA–Sharks; FAO, 1999). En los veinte años siguientes se introdujeron otras medidas de manejo (por ejemplo, restricciones al comercio), pero su implementación plena es un desafío (Lawson y Fordham, 2018) y su efectividad aún debe demostrarse a escala global (Davidson et al., 2016), pese a algunos resultados locales prometedores (por ejemplo, las mantas y diablos [Mobulidae] en Indonesia; Booth, Pooley, et al., 2020). En el Gran Caribe, el manejo sólido de tiburones y rayas es en general inexistente (Davidson et al., 2016) fuera de Estados Unidos (Fowler et al., 2005) y, hace una década, se describía como un mosaico de medidas inconsistentes (Kyne et al., 2012). Además, el Gran Caribe era hasta hace poco una de las regiones con mayor deficiencia de datos sobre tiburones y rayas del mundo (Dulvy et al., 2014). Según la Lista Roja de Especies Amenazadas de la UICN (Lista Roja de la UICN) en 2012, casi la mitad (47 %) de las especies de tiburones y rayas de la región estaban evaluadas como Datos Insuficientes, y casi una de cada cinco (19 %) estaba en una categoría de amenaza, principalmente debido a la sobrepesca (Kyne et al., 2012). Algunos relatos históricos y datos arqueológicos sugieren que la pesca ya había mermado a los grandes vertebrados marinos del Caribe incluso antes de que la tecnología pesquera moderna y la investigación científica se expandieran a mediados del siglo XX (Jackson et al., 2001; McClenachan et al., 2006; Wing y Wing, 2001), aunque estas conclusiones son debatidas (véase, por ejemplo, Baisre, 2010; McClenachan et al., 2010). Sin embargo, tan recientemente como en la década de 1950 los tiburones aún se describían como muy abundantes (Viele, 1996; Ward-Paige et al., 2010), lo que posiblemente ilustra el concepto de líneas base cambiantes (Pauly, 1995). Las tendencias contemporáneas de abundancia de tiburones en el Gran Caribe se han derivado de series de tiempo de datos de captura provenientes de muestreos independientes de la pesquería y de pesquerías estadounidenses (incluida la flota de palangre pelágico que cubre buena parte del Caribe). Estos datos sugieren declives en la abundancia o la talla de algunos tiburones costeros (Cortés et al., 2002; Hayes et al., 2009; Powers et al., 2013) y oceánicos (Baum y Blanchard, 2010; Cortés et al., 2007; Jiao et al., 2009), particularmente tras la intensa pesca de la década de 1980 (Bonfil, 1997; Castro, 2013; Musick et al., 1993). Las magnitudes de algunos declives ampliamente reportados en la abundancia de tiburones de la región son objeto de debate (véase Baum et al., 2003; Baum y Myers, 2004; Burgess et al., 2005). Las encuestas a pescadores (Graham, 2007) y la variación espacial en la abundancia relativa también sugieren que la pesca causó declives en algunas poblaciones de tiburones costeros. Cabe destacar que la abundancia suele ser mayor en zonas económicas exclusivas (ZEE) con manejo intensivo (MacNeil et al., 2020), reservas marinas (Bond et al., 2012; MacNeil et al., 2020), santuarios de tiburones (Clementi et al., 2021) y áreas remotas alejadas de los centros de población humana (Ward-Paige et al., 2010). Existen, sin embargo, señales de estabilidad o recuperación recientes en algunas poblaciones de tiburones mejor estudiadas de Estados Unidos (Carlson et al., 2012; Peterson et al., 2017), Bahamas (Hansell et al., 2018; Talwar et al., 2020) y Belice (Bond et al., 2017; Flowers et al., 2022), en gran medida gracias al manejo dirigido que comenzó en la década de 1990 (Castro, 2013; Ward-Paige, 2017). Por lo demás, la falta de datos ha dificultado la evaluación de las tendencias poblacionales de los tiburones. Las tendencias poblacionales de las rayas (superorden Batoidea) son poco conocidas en el Gran Caribe y, en el caso de las especies costeras, varían espacialmente. Por ejemplo, los declives abruptos en la abundancia de peces sierra (Pristidae) están bien documentados en toda la región (Bonfil et al., 2017; Fernandez-Carvalho et al., 2014; Thorson, 1982), pero al menos una población altamente manejada y bien estudiada de pez sierra de diente pequeño (Pristis pectinata, Pristidae) es estable y probablemente se está recuperando en Estados Unidos (Brame et al., 2019). Adicionalmente, observaciones de buzos entre 1994 y 2007 sugirieron que la abundancia de la raya amarilla (Urobatis jamaicensis, Urotrygonidae) disminuyó en los arrecifes de coral, pero aumentó en algunas áreas donde las poblaciones de depredadores habían sido sobreexplotadas (por ejemplo, Jamaica; Ward-Paige et al., 2011). Hábitats importantes para las rayas (y los tiburones), como los arrecifes de coral, los pastos marinos y los manglares (White y Sommerville, 2010), también se han degradado en el Gran Caribe (Jackson et al., 2014; Polidoro et al., 2010; Waycott et al., 2009), lo que puede provocar contracciones del ámbito de distribución y un mayor riesgo de extinción (Yan et al., 2021). Las tendencias poblacionales de las quimeras (orden Chimaeriformes) son desconocidas en el Gran Caribe, pero las quimeras suelen habitar aguas profundas alejadas de la costa, se capturan como fauna incidental y tienen escaso valor comercial (Finucci et al., 2021). A nivel global, su contribución a las capturas totales de condrictios es muy baja (Dulvy et al., 2014). Además, las quimeras habitan principalmente a profundidades mayores que las que alcanza la mayoría de las pesquerías del Caribe (Finucci et al., 2021). Es probable que, como resultado, sus poblaciones —junto con las de tiburones y rayas de aguas profundas— sean estables (Dulvy et al., 2014), pero siguen poco estudiadas. Recientemente ha habido esfuerzos para reducir la deficiencia de datos y mejorar el manejo de tiburones y rayas en esta región. En 2017, la Comisión de Pesca para el Atlántico Centro-Occidental de la FAO (WECAFC), un órgano asesor pesquero regional cuyos miembros pescan o están ubicados en el Área Mayor de Pesca 31 de la FAO (Atlántico centro-occidental; ACO) y en la parte norte del Área Mayor de Pesca 41 (Atlántico suroccidental), convocó la primera reunión del grupo de trabajo sobre conservación y manejo de tiburones y rayas. El grupo de trabajo resaltó la necesidad de coordinar el manejo nacional y regional e hizo varias recomendaciones específicas sobre las pesquerías de tiburones y rayas (WECAFC, 2018). También revisó un Plan de Acción Regional (RPOA–Sharks), una v
Ver PDF -

Rayas redondas del Pacífico oriental
Rayas redondas del Pacífico oriental Jorge Manuel Morales-Saldaña, Katelyn B. Herman, Paola A. Mejía-Falla, Andrés F. Navia, Elisa Areano, Cristopher G. Avalos Castillo, Mario Espinoza, Ana Cevallos, Adriana González Pestana, Alejandra González, Juan Carlos Pérez-Jiménez, Ximena Velez-Zuazo, Patricia Charvet y Peter M. Kyne En: DellaSala, D.A., Goldstein, M.I. (Eds.), Imperiled: The Encyclopedia of Conservation, vol. 2. Elsevier, 2022, pp. 773–783. https://dx.doi.org/10.1016/B978-0-12-821139-7.00122-7 Glosario Glosario. Especie de captura incidental: especie capturada de manera incidental durante operaciones de pesca dirigidas a otras especies. Las especies capturadas incidentalmente pueden ser desembarcadas (lo que en general se denomina subproducto) o liberadas en el mar, vivas (aunque pueden estar heridas) o muertas. Condrictios: los peces cartilaginosos; un grupo diverso de 1250 peces caracterizado por un esqueleto compuesto principalmente de cartílago. Este grupo incluye tiburones, rayas y quimeras. Océano Pacífico oriental: la región del océano Pacífico asociada al continente americano, que se extiende desde Alaska, en América del Norte, hasta Chile, en América del Sur. Elasmobranquios: subgrupo de los condrictios (peces cartilaginosos) que comprende a los tiburones y las rayas, pero no a las quimeras. Redes agalleras: arte de pesca que consiste en una red de malla de nailon suspendida verticalmente en la columna de agua. Las redes varían en longitud y luz de malla y pueden calarse en el fondo o en la columna de agua. Pesquerías industriales: aquellas pesquerías en las que la inversión total de capital es relativamente grande (por ejemplo, embarcaciones más grandes, mayor autonomía, equipo de pesca sofisticado, almacenamiento prolongado del pescado) y cuyos productos se destinan a mercados nacionales o globales. Palangres: arte de pesca que consiste en una línea madre larga de monofilamento suspendida horizontalmente en la columna de agua o sobre el fondo marino, con anzuelos cebados (de cientos a miles) fijados por separado a lo largo de la línea madre. Pesquerías de pequeña escala: en sentido amplio, aquellas pesquerías en las que la inversión total de capital es relativamente baja (por ejemplo, embarcaciones pequeñas, autonomía restringida, tecnología limitada), que suelen operar cerca de la costa y cuyos productos se destinan al consumo de subsistencia o a mercados locales y nacionales. A menudo se las denomina pesquerías artesanales o de subsistencia. Especie objetivo: especie que una pesquería determinada busca capturar. Redes de arrastre: arte de pesca compuesto por redes que se arrastran sobre el fondo marino (arrastres bentónicos) o en la columna de agua (arrastres pelágicos). Los arrastres son artes de pesca en gran medida no selectivos y, por el daño físico directo que causan al fondo marino, se consideran uno de los métodos de pesca más destructivos. Resumen Debido a la demanda continua y creciente de sus productos, las poblaciones de condrictios están frecuentemente sujetas a una explotación intensa por parte de numerosas pesquerías de pequeña escala e industriales en todo el mundo. Esta situación genera una necesidad urgente de conservación y manejo de muchas especies de condrictios. Entre ellas se encuentran las rayas redondas del Pacífico oriental, de la familia Urotrygonidae, que son pequeñas, discretas y comúnmente pasadas por alto en la mayor parte de su ámbito de distribución. El presente artículo ofrece una visión general de las rayas redondas endémicas del Pacífico oriental (desde Estados Unidos hasta Chile) y resume la información existente sobre varios aspectos de este grupo, incluyendo su diversidad, ámbito de distribución y hábitat, rasgos de historia de vida, principales amenazas y estado de conservación. De las 17 especies de rayas redondas a nivel mundial, 14 se encuentran en el Pacífico oriental. Existe preocupación de conservación por tres especies amenazadas y seis Casi Amenazadas. Las rayas redondas se capturan comúnmente como fauna incidental —retenidas o descartadas— en una diversidad de pesquerías de pequeña escala e industriales que operan en todo su ámbito de distribución y que carecen de manejo o de una fiscalización efectiva de las regulaciones. Esto pone de relieve la necesidad de monitorear de cerca las poblaciones de estas especies y de realizar investigación para desarrollar estrategias de conservación y manejo. Al igual que ocurre con muchos otros elasmobranquios, existe una carencia significativa de datos biológicos, ecológicos y pesqueros (por ejemplo, desembarques y tasas de captura) para la mayoría de las especies de rayas redondas. Esta situación dificulta el desarrollo de planes de conservación para las especies amenazadas y subraya la necesidad de crear programas adecuados de monitoreo y manejo pesquero. La raya redonda reticulada, En Peligro Crítico y endémica de ámbito restringido del golfo de Panamá, es una prioridad urgente para la planificación de la conservación, sin reportes de su persistencia desde 1990. Mejorar el manejo pesquero será fundamental para evitar un mayor declive y la extinción de las poblaciones de rayas redondas del Pacífico oriental. Introducción A nivel global, los tiburones y sus parientes enfrentan un riesgo elevado de extinción (IUCN, 2021). El impacto de las pesquerías y de otros factores de presión de origen humano, como la pérdida y degradación del hábitat, ha llevado a que el 36 % de los peces condrictios evaluados se considere amenazado de extinción a nivel global (IUCN, 2021). Esto sitúa a los condrictios entre los vertebrados evaluados con mayores niveles de riesgo de extinción y resalta la urgencia de implementar un manejo pesquero eficaz y una planificación de la conservación que puedan evitar extinciones y asegurar la supervivencia de sus poblaciones. Persisten vacíos críticos de información sobre el estado de muchas especies y el impacto de las amenazas que enfrentan. Esta falta de información es particularmente evidente en aquellas especies poco conocidas, no carismáticas y que suelen alcanzar un bajo precio de mercado o cuyos productos carecen de valor. Estos factores hacen que tales especies sean comúnmente ignoradas por el manejo pesquero. Uno de esos grupos, tradicionalmente desatendido, es el de las rayas redondas (familia Urotrygonidae). Las rayas redondas son rayas látigo pequeñas (talla máxima menor a 70 cm de longitud total, LT) distribuidas exclusivamente en aguas marinas costeras tropicales y templadas de América del Norte, Central y del Sur. Se encuentran comúnmente en ambientes cercanos a la costa y están asociadas principalmente a fondos de sedimento blando, donde pueden hallar sus presas, generalmente crustáceos, moluscos, poliquetos y peces óseos. Como resultado de su hábito demersal (es decir, especies asociadas al fondo marino) y su baja movilidad, estas especies se capturan comúnmente como fauna incidental en pesquerías de arrastre de fondo. Debido a su pequeño tamaño corporal y a su escaso o nulo valor económico, suelen ser descartadas por la borda, normalmente muertas o gravemente heridas, aunque a veces también se retienen para el mercado local. Muchas de las pesquerías que las capturan carecen de un manejo eficaz (por ejemplo, baja resolución taxonómica de los datos de captura, monitoreo limitado, escasas regulaciones de captura, fiscalización deficiente), lo que no solo dificulta su manejo y conservación, sino que además puede conducir a agotamientos poblacionales que pasen inadvertidos. Este artículo presenta una visión general del estado actual de las rayas redondas endémicas del Pacífico oriental, región que alberga 14 de las 17 especies de esta familia. El artículo resume varios aspectos importantes de este grupo, incluyendo su diversidad, ámbito de distribución y hábitat, rasgos de historia de vida, principales amenazas y estado de conservación. También destaca el riesgo de extinción actual de las especies, con el fin de generar conciencia sobre el declive de algunas de ellas y sobre la importancia de implementar medidas de manejo antes de que sus poblaciones lleguen a un punto sin retorno. Diversidad En todo el mundo existen 26 familias reconocidas de rayas (Last et al., 2016). La familia Urotrygonidae, o rayas redondas, es una familia de rayas látigo que comprende 17 especies en dos géneros: Urobatis (6 especies) y Urotrygon (11 especies). En su mayor parte, estas especies (14 especies; 82 %) son endémicas del océano Pacífico oriental (la Figura 1 muestra algunos ejemplos de rayas redondas). Las especies restantes —la raya redonda amarilla Urobatis jamaicensis, la raya redonda de ojo pequeño Urotrygon microphthalmum y la raya redonda de Venezuela Urotrygon venezuelae— se distribuyen en el Atlántico occidental (Last et al., 2016). Las especies de esta familia se caracterizan por su disco, o cuerpo, de forma casi redonda, lo que da al grupo su nombre común. Sin embargo, el cuerpo de la mayoría de las especies es más ancho que largo, lo que le da una apariencia ovalada. El grupo presenta además otras características notables, como la ausencia de aletas dorsales o anal, un hocico que va de muy pronunciado a casi imperceptible, y una cola corta, generalmente no más larga que el cuerpo, con una espina aserrada y una aleta caudal (Last et al., 2016). Algunas especies también exhiben pequeños dentículos de punta roma o puntiaguda en su superficie dorsal. La coloración dorsal varía desde pardo oscuro con pequeñas manchas irregulares de color pardo negruzco, por ejemplo en la raya redonda moteada Urotrygon chilensis, hasta amarillenta o blanquecina densamente cubierta de finas reticulaciones pardas o anaranjadas, como en la raya redonda leopardo Urobatis pardalis, de donde deriva su nombre. Figura 1. Ejemplos de la diversidad de rayas redondas del Pacífico oriental. (A) Raya redonda de Tumbes Urobatis tumbesensis; (B) raya redonda moteada Urotrygon chilensis; (C) raya redonda manchada Urobatis maculatus; (D) raya redonda de Haller Urobatis halleri. Créditos fotográficos: Adriana González Pestana (fotos A y B), Sebastián Hernández Muñoz (foto C), Steven Lara (foto D). Ámbito de distribución y hábitat La distribución de las rayas redondas en el Pacífico oriental varía ampliamente. La especie de distribución más amplia es la raya redonda de Haller Urobatis halleri, que va desde el norte de California, Estados Unidos, hasta el norte de Perú. Otras especies están restringidas a áreas más pequeñas: por ejemplo, la raya redonda enana Urotrygon nana se distribuye desde el centro de México hasta Panamá; la raya redonda de Tumbes Urobatis tumbesensis desde Colombia hasta el norte de Perú; y la raya redonda Cimar Urotrygon cimar desde el centro de México hasta Costa Rica. También hay especies endémicas de países específicos. Es el caso de la raya redonda diana Urobatis concentricus, endémica de México; la raya redonda reticulada Urotrygon reticulata, que solo se encuentra en el golfo de Panamá; y la raya redonda leopardo, presente únicamente en Costa Rica. Aunque ha habido reportes de estas dos últimas especies fuera de su ámbito endémico, aún no han sido confirmados y, por lo tanto, se las trata como endémicas a nivel de país. Las rayas redondas se distribuyen en 11 países del Pacífico oriental, con niveles variables de riqueza de especies. México y Costa Rica tienen el mayor número de rayas redondas, mientras que la riqueza de especies en Estados Unidos y Chile es relativamente baja (Figura 2). Además, hay algunas regiones con alta riqueza de especies, como el golfo de California (México), las áreas costeras desde el golfo de Tehuantepec (México) hasta el golfo de Panamá, y desde el sur de Colombia hasta Ecuador (Figura 3). Las rayas redondas se encuentran principalmente en aguas tropicales, con algunas especies, como la raya redonda de Haller, que se extienden hasta aguas templadas. Habitan sobre todo aguas costeras y de la plataforma continental a profundidade
Ver PDF -

En busca de los Tiburones de Pascua: un análisis genético de los mercados de carne de tiburón y raya en Guatemala
En busca de los tiburones de Pascua: un análisis genético de los mercados de carne de tiburón y raya en Guatemala Devanshi Kasana, Hector Daniel Martinez, Julio Sánchez-Jiménez, Elisa Areano, Ana Hacohen-Domené, Rachel T. Graham, Demian D. Chapman Fisheries Research 283 (2025) 107300. Disponible en línea el 16 de febrero de 2025. doi:10.1016/j.fishres.2025.107300 Resumen Guatemala, situada en América Central sobre el océano Pacífico oriental y el mar Caribe occidental, es un consumidor regional importante de carne de elasmobranquios (tiburones y rayas) durante la Cuaresma católica. La carne de elasmobranquios se abastece mediante una combinación de pesquerías nacionales e importaciones. Pese a ser un componente de la seguridad económica y nutricional de las comunidades locales, las pesquerías y el comercio carecen de monitoreo y manejo. La escasa información sobre desembarques por especie y sobre las cadenas de suministro pesqueras y comerciales se complica aún más por la geografía bicostera de Guatemala, que exige separar los desembarques por origen geográfico para poder realizar evaluaciones robustas de los stocks e intervenciones de manejo dirigidas. Este estudio emplea técnicas moleculares para identificar las especies y, en el caso de la especie principal del comercio, la procedencia por cuenca oceánica, en muestras de carne recolectadas en mercados nacionales de toda Guatemala en 2022, así como en muestras históricas de 2016 y 2017. El análisis genético exitoso de 370 muestras de carne identificó 19 especies de tiburones y rayas en el comercio, incluidas muchas especies amenazadas, así como una proporción significativa de especies actualmente incluidas en la Convención sobre el Comercio Internacional de Especies Amenazadas de Fauna y Flora Silvestres (CITES). También reveló un etiquetado incorrecto sustancial (22 %) de peces teleósteos vendidos como elasmobranquios. Los mercados de la costa del Pacífico y el mayor mercado del interior (Ciudad de Guatemala, el mayor centro urbano) dependieron predominantemente de desembarques nacionales e importados de la costa del Pacífico, mientras que Ciudad de Guatemala también recibió aportes de desembarques nacionales y probablemente importados de la costa atlántica. Un mercado costero del Atlántico muestreado se abastecía exclusivamente de esa cuenca. Algunas importaciones de especies del océano Pacífico se reportan a CITES, pero existe un manejo nacional limitado de los desembarques de tiburones y rayas pelágicos y costeros en la costa del Pacífico, algo que debe corregirse dada la importancia de estas especies y poblaciones para el consumo de carne de elasmobranquios en Guatemala. Se requiere una mejor aplicación de CITES para asegurar importaciones sostenibles de tiburones del océano Atlántico, mientras que los esfuerzos recientes para manejar los desembarques nacionales del Atlántico deben continuar y probablemente ampliarse para promover la sostenibilidad. Introducción La creciente demanda de mercado de productos de tiburones y rayas («elasmobranquios»), junto con el crecimiento del comercio, sigue aumentando la presión sobre sus poblaciones en todo el mundo (Jabado et al., 2015; Davidson et al., 2016). La expansión de los mercados crea redes comerciales que permiten que los productos se desplacen «del barco al plato», es decir, desde el punto de captura hasta el consumidor, a través de cadenas de suministro (Mundy y Sant, 2015). Si bien el comercio global de aletas de elasmobranquios ha sido ampliamente investigado (Clarke et al., 2007; Fields et al., 2018; Cardeñosa et al., 2020, 2022), los mercados de carne de elasmobranquios a escala global, regional y nacional siguen siendo poco conocidos. Sin embargo, el comercio de carne de elasmobranquios continúa superando al de aletas —tanto en volumen como en valor— y contribuye a la seguridad económica y nutricional de diversos actores en muchas zonas costeras del mundo (Glaus et al., 2019; Niedermüller et al., 2021; Seidu et al., 2022). Las redes globales de comercio de carne de elasmobranquios son complejas, cambiantes y geográficamente dispersas, e incorporan cadenas de suministro nuevas y menos centralizadas con múltiples actores nacionales e internacionales (Dent y Clarke, 2015). La transparencia y la trazabilidad a lo largo de las cadenas de suministro pueden ayudar a garantizar que el comercio sea legal, que las especies protegidas se mantengan fuera del mercado y que los consumidores puedan tomar decisiones de consumo informadas (Fox et al., 2018; Niedermüller et al., 2021; Hasan et al., 2023). Debido a la escasez de datos, los países suelen consolidar los datos de captura de elasmobranquios en categorías agregadas (como «tiburones nep») al reportarlos a la Organización de las Naciones Unidas para la Alimentación y la Agricultura (FAO). De manera similar, los datos comerciales se consolidan en categorías agregadas de productos que combinan distintos tipos de producto y especies (Musick y Musick, 2011; Dent y Clarke, 2015; Barone y Friedman, 2021; Fowler et al., 2021). Este enfoque plantea desafíos evidentes para establecer la trazabilidad y para distinguir entre los mercados de aletas y de carne. Además, a medida que un número creciente de especies de tiburón se incluye en el Apéndice II de CITES —lo que exige mayor transparencia—, aumenta la necesidad de que las Partes establezcan líneas base confiables de captura y comercio específicas por especie. La mayoría de las naciones costeras limita con un solo océano y, por lo tanto, sus desembarques de elasmobranquios provienen de especies y poblaciones de ese océano. Algunas naciones centroamericanas tienen costa tanto en el Pacífico como en el Atlántico, lo que significa que sus desembarques pueden incluir especies del océano Atlántico, especies del océano Pacífico e individuos atlánticos o pacíficos de especies cosmopolitas. La información nacional de desembarques y comercio por especie está creciendo en la región, en parte debido a la inclusión de muchos elasmobranquios en CITES. Sin embargo, las naciones bicosteras de América Central necesitan separar además los desembarques por especie según correspondan a poblaciones del océano Atlántico o del Pacífico, para evaluar y manejar adecuadamente sus pesquerías. Guatemala ejemplifica este escenario. Allí, las prácticas religiosas y las tradiciones culinarias intensifican la demanda de carne de elasmobranquios salada y fresca durante la Cuaresma católica (Clementi et al., 2020; Sabbagh y Hickey, 2020; Quinlan et al., 2021). El país satisface esta demanda con una combinación de importaciones y de sus pesquerías artesanales nacionales de elasmobranquios, que operan tanto en el océano Pacífico como en el mar Caribe (Hacohen-Domené et al., 2020; Castillo y Morales, 2021; Sánchez et al., 2023). El mercado interno de carne de elasmobranquios en Guatemala es, por lo tanto, una combinación de pesquerías nacionales bicosteras e importaciones internacionales (Hacohen-Domené et al., 2020; Sabbagh y Hickey, 2020; Castillo y Morales, 2021). Pese al consumo significativo, el comercio de carne de elasmobranquios sigue en gran medida sin monitoreo ni regulación en Guatemala, con muy poca información sobre las especies y cantidades desembarcadas y comercializadas. La vulnerabilidad a la pesca depende de la especie, lo que subraya la necesidad de datos de captura y comercio específicos por especie para lograr intervenciones de manejo y conservación exitosas (Abercrombie et al., 2005; Clarke et al., 2006; Davidson et al., 2016; Dulvy et al., 2017). Adicionalmente, el «código postal de ADN» (Fields et al., 2020; Cardeñosa et al., 2020a, 2020b) permite establecer la procedencia de los productos por cuenca oceánica, lo que posibilita que las naciones bicosteras identifiquen rutas comerciales críticas y adapten sus decisiones de manejo a cada población explotada. Esta información es crucial para los administradores de recursos que buscan establecer prácticas comerciales legales, trazables y sostenibles. El tiburón sedoso (Carcharhinus falciformis), del que se sabe que domina los desembarques tanto en la costa atlántica como en la pacífica (Ixquiac Cabrera et al., 2009; Hacohen-Domené et al., 2020), es un buen ejemplo para ilustrar este enfoque, dada su distribución cosmopolita. Hasta la fecha, el comercio de carne de elasmobranquios se ha caracterizado mediante una combinación de métodos de encuesta (por ejemplo, de mercados, de conocimiento de pescadores y de comerciantes) (Jabado et al., 2015; Karnad et al., 2020; Haque et al., 2021) y de enfoques genéticos para identificar especies y productos de tiburón difíciles de identificar morfológicamente (Liu et al., 2013; Almerón-Souza et al., 2018; Wainwright et al., 2018; Pazartzi et al., 2019). Comprender los mercados internos de elasmobranquios en Guatemala tiene implicaciones para el manejo de las pesquerías nacionales, para la implementación y el cumplimiento de las regulaciones comerciales internacionales como CITES y para la conservación de las especies que abastecen esta demanda. Mediante técnicas moleculares, los objetivos de este estudio fueron: (1) establecer una línea base específica por especie para la carne de tiburón y raya en el comercio interno; (2) evaluar el estado de conservación de las especies presentes en los mercados; y (3) determinar el origen geográfico de una especie clave (el tiburón sedoso, Carcharhinus falciformis) y la contribución relativa de las cuencas del Atlántico y del Pacífico. Materiales y métodos Recolección de muestras y extracción de ADN Los mercados internos de pescado que venden carne de tiburón en Guatemala se identificaron con base en un extenso trabajo preliminar y en las recomendaciones de nuestros colaboradores de Fundación Mundo Azul, quienes realizaron el trabajo de campo para ubicar los mercados de escala significativa. Se seleccionaron seis ciudades clave con mercados de pescado importantes que reciben carne de tiburón desde sitios de desembarque y otros mercados locales, tanto del Atlántico como del Pacífico (Figura 1). Esto aseguró una cobertura bicostera adecuada del conjunto de especies disponibles para un consumidor guatemalteco. Los mercados se definieron como puntos de venta y, por lo tanto, se incluyeron tanto mercados organizados con varios puestos en una misma zona como vendedores independientes que operan fuera de esos arreglos formales. Mediante muestreo por conveniencia —una forma de muestreo no probabilístico para seleccionar participantes (Newing et al., 2011)—, los investigadores identificaron y muestrearon a todos los vendedores disponibles y dispuestos que vendían productos de carne de tiburón. Se explicó a los vendedores el propósito del proyecto y las medidas de anonimato y confidencialidad. Para evitar la redundancia y el doble muestreo, en cada vendedor se muestrearon los productos vendidos como filetes de elasmobranquio que: i) podían diferenciarse visualmente de los demás; ii) se vendían como productos distintos (frescos frente a salados); o iii) el propio vendedor identificaba específicamente como diferentes (es decir, etiquetados de otra manera). En abril de 2022 se recolectaron en total 145 muestras de tiburones y rayas frescos y salados en mercados de pescado de Guatemala. También obtuvimos muestras recolectadas de forma no probabilística en otros mercados y centros de acopio de productos del mar de Guatemala, proporcionadas por colaboradores de Fundación Mundo Azul. Estas incluyeron 146 muestras de 2016 y 116 muestras de 2017. Todas las muestras de ADN se obtuvieron y transportaron para su análisis de laboratorio al amparo de los permisos de investigación y exportación correspondientes del Consejo Nacional de Áreas Protegidas (CONAP) de Guatemala n.º I_DRO-002-2021, del Departamento de Pesca de Belice y de la exención de protocolo de cuidado animal aprobada n.º IACUC-21-071. Las muestras se preservaron en etanol al 95 % y luego se mantuvieron a −20 ˚C hasta su análisis
Ver PDF -
Nuevos registros y morfometría del tiburón de seis agallas del Atlántico Hexanchus vitulus en la costa caribeña de Guatemala
Primeros registros y mediciones de diez tiburones de seis agallas del Atlántico capturados por pescadores artesanales en el Caribe de Guatemala entre 2015 y 2019.
Ver PDF -
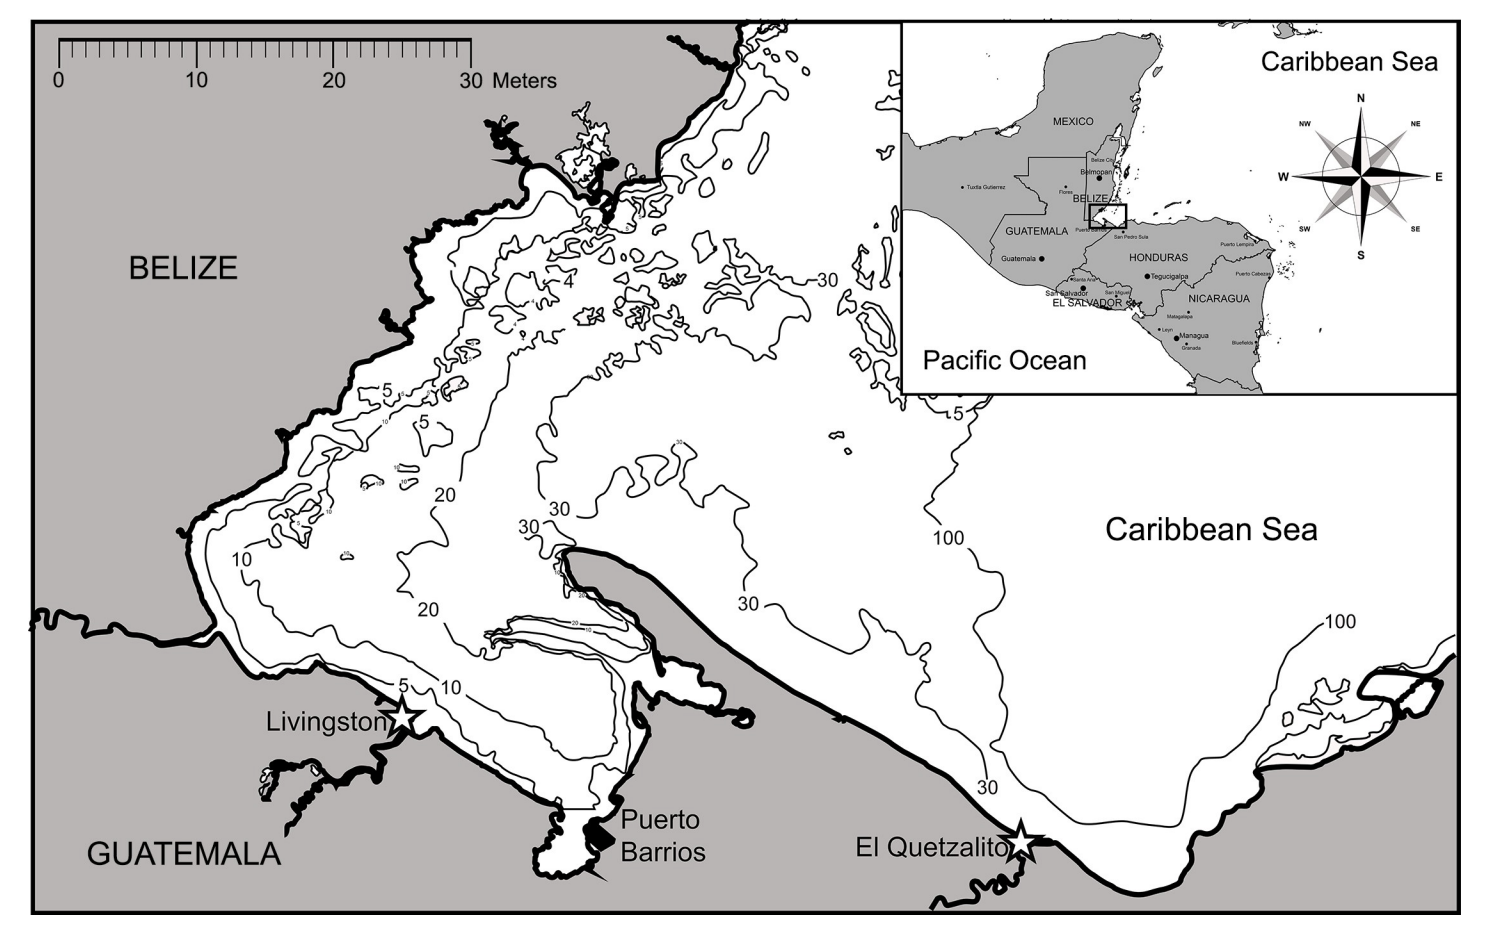
Descripción y caracterización de la pesca artesanal de elasmobranquios en la costa caribeña de Guatemala
Estudio de los desembarques de tiburones, rayas y quimeras en El Quetzalito y Livingston entre 2015 y 2017.
Ver PDF -
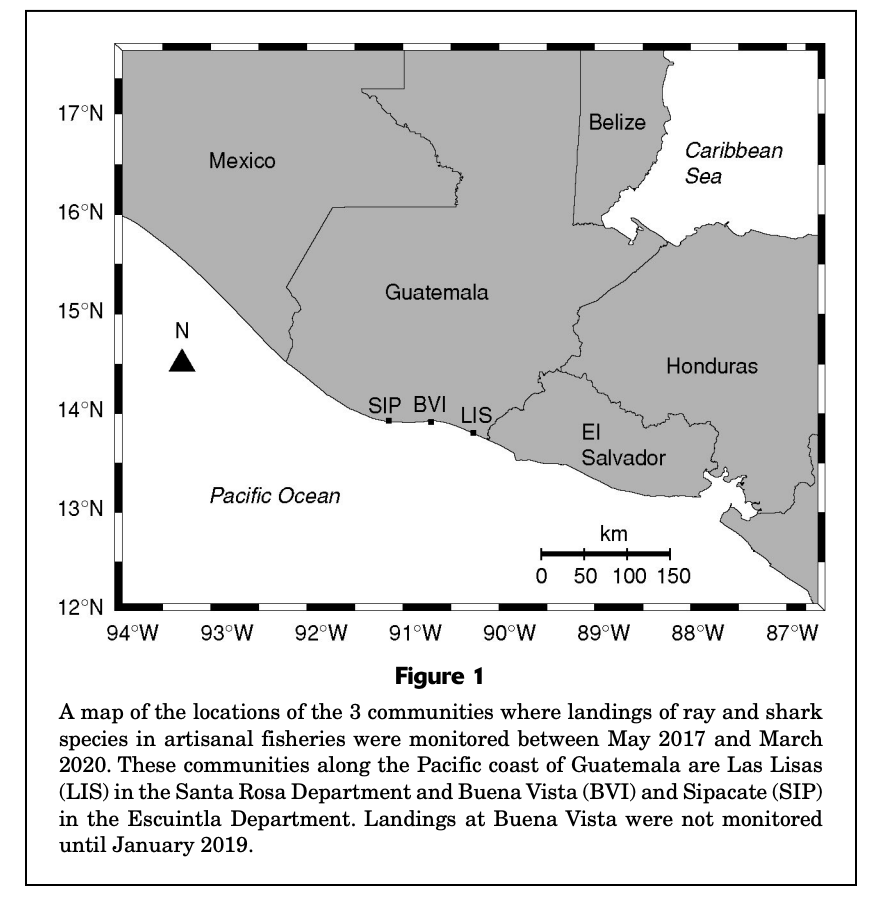
Caracterización de las pesquerías artesanales de elasmobranquios en la costa del Pacífico de Guatemala
Monitoreo de tiburones y rayas en Las Lisas, Sipacate y Buena Vista entre 2017 y 2020.
Ver PDF -
Primer reporte del tiburón gato de silla blanca Scyliorhinus hesperius (Springer, 1966) en el mar Caribe de Guatemala
Primer registro en Guatemala de cinco machos maduros de tiburón gato de silla blanca capturados a 200 m de profundidad.
Ver PDF -

Primer registro del tiburón Heptranchias perlo (Bonnaterre,1788) en el Caribe de Guatemala
Primer registro confirmado del tiburón de siete branquias Heptranchias perlo en el Caribe de Guatemala, basado en dos hembras capturadas cerca de El Quetzalito a aproximadamente 200 m de profundidad.
Ver PDF -
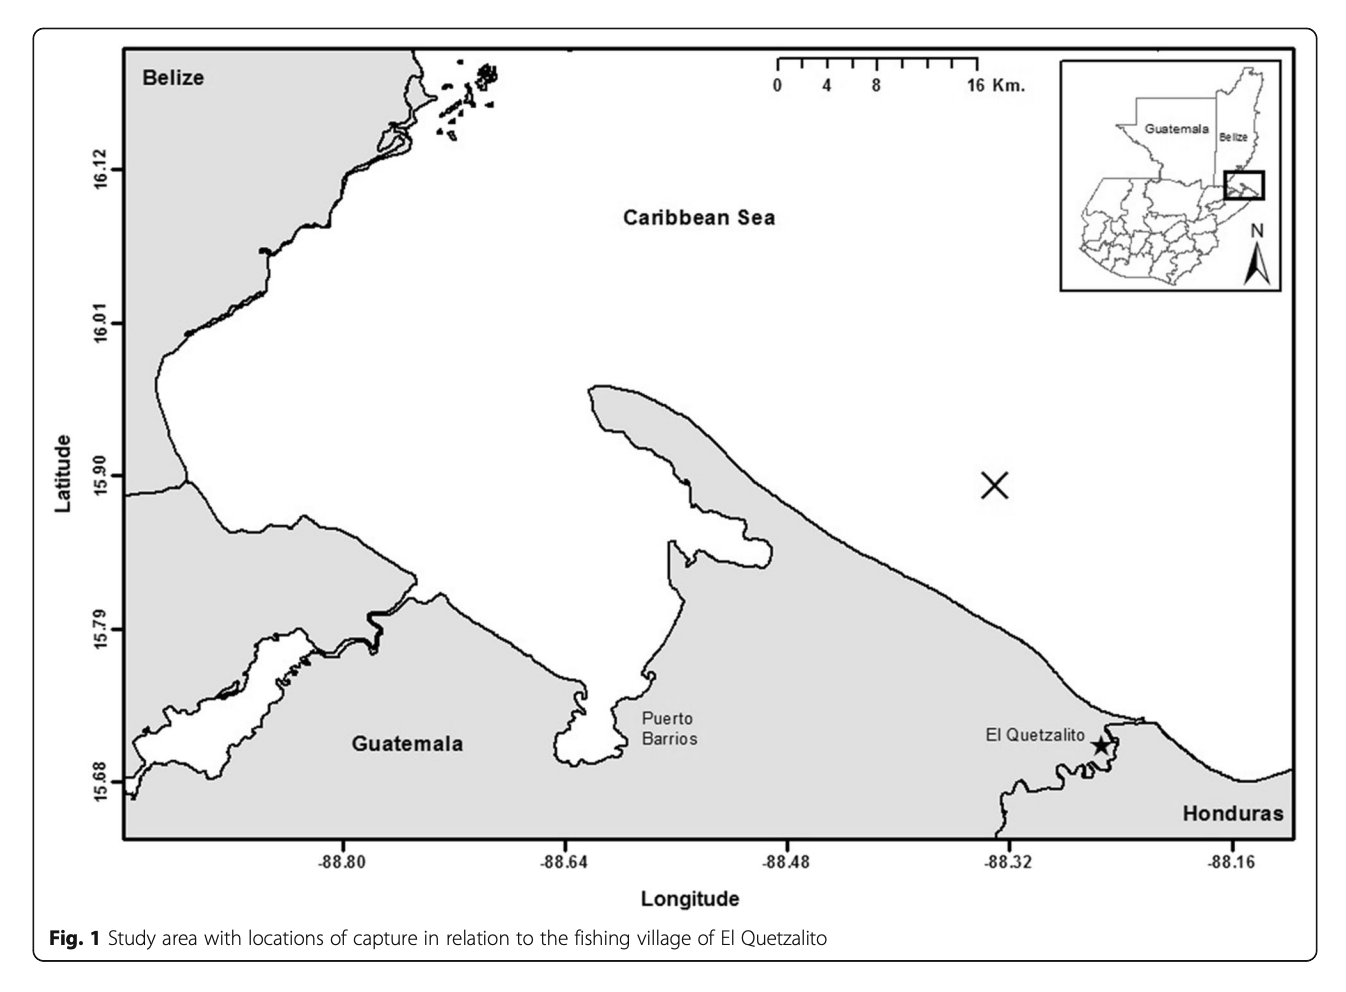
Primer registro de la quimera Neoharriotta carri (Bullis y Carpenter, 1966) en el Caribe de Guatemala
Primeros registros guatemaltecos de una quimera macho y una hembra capturadas frente a El Quetzalito.
Ver PDF -
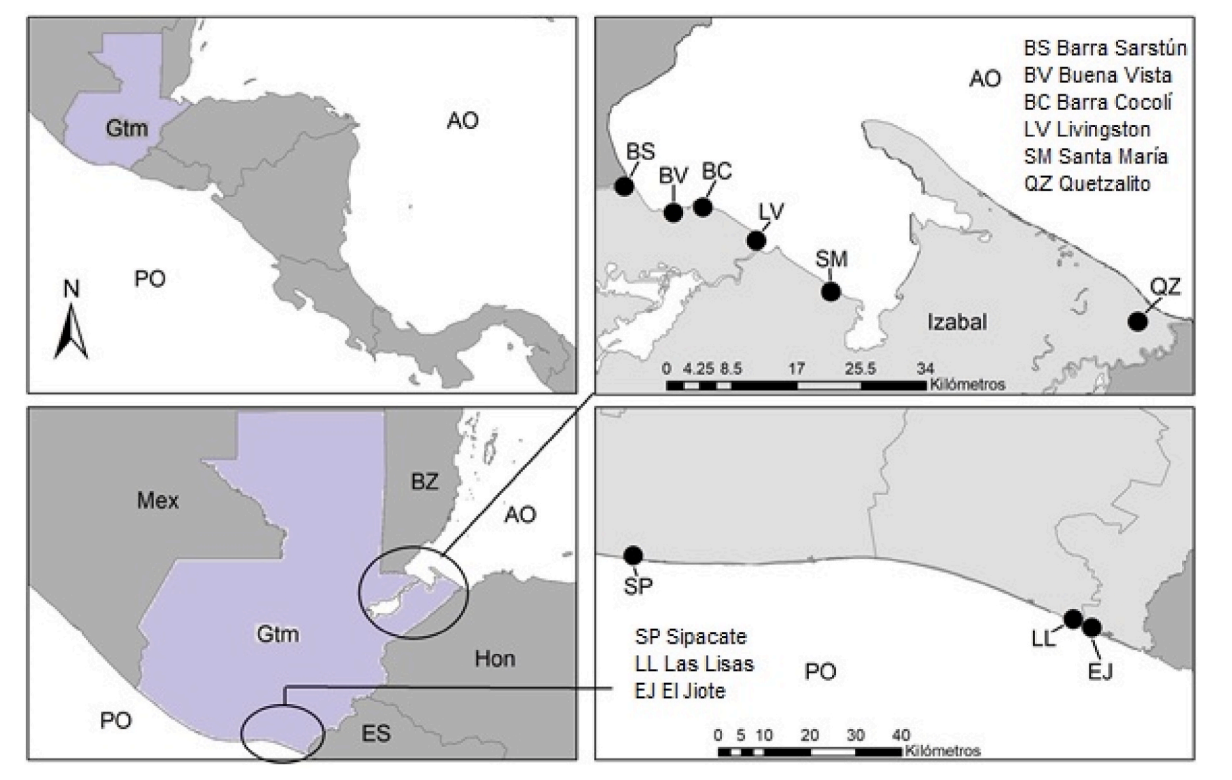
Pesca artesanal a pequeña escala de elasmobranquios en Guatemala: aspectos socioeconómicos y estructura de la cadena de valor
Análisis socioeconómico y de cadena de valor de la pesca artesanal de tiburones y rayas en Guatemala.
Ver PDF
